Wednesday, June 21, 2023

Los Odontocetos Fósiles de Panamá

 Hoy (miércoles 21 de junio de 2023) acaba de salir nuestro trabajo más reciente en la revista Biology Letters! Esta vez se trata sobre odontocetos (delfines, marsopas, cachalotes, etc) fósiles de Panamá (Benites-Palomino et al., 2023). Este trabajo ha sido una colaboración con Aldo Benites Palomino, Carlos De Gracia y Carlos Jaramillo. En el mismo reportamos nuevos registros de odontocetos para la Formación Chagres del Mioceno Tardío de Panamá, la cual aflora a lo largo de la costa caribeña del país.

Afloramientos de la Formación Chagres, cerca de Piña, Provincia de Colón, Panamá.

La fauna de odontocetos que reportamos incluye a un cachalote raptorial (cf. Acrophyseter sp.), dos cachalotes pigmeos - uno perteneciente a la subfamilia Scaphokogiinae y el otro es Nanokogia isthmia - una marsopa del género Piscolithax sp. y el "delfín de río" Isthminia panamensis. En trabajos previos ya se había reportado la presencia de cetáceos en otras formaciones en Panamá (Uhen et al., 2010; Cortés et al., 2019), mientras que para la Formación Chagres ya había un registro de chachalote y se había descrito Nanokogia isthmia e Isthminia panamensis (Vigil & Laurito, 2014; Velez-Juarbe et al., 2015; Pyenson et al., 2015). En este nuevo trabajo aclaramos la identidad del cachalote, identificándolo como una especie cercana a los cachalotes raptoriales del género Acrophyseter, y describimos además un cráneo parcial de un cachalote pigmeo de la subfamilia Scaphokogiinae y el cráneo parcial de la marsopa Piscolithax sp.

El colectivo de odontocetos fósiles de la Formación Chagres en Panamá.

La identificación de estas especies adicionales nos sirvió para comparar la fauna de odontocetos del Caribe panameño con otras de edad similar en las Américas. Particularmente hicimos comparación con los odontocetos de las formaciones Yorktown y Monterey en Estados Unidos, Almejas en Baja California, Pisco en Perú y Bahía Inglesa en Chile (Barnes, 1973, 1984, 1998; Muizon, 1984; Whitmore & Kaltenbach, 2008; Pyenson et al., 2014; Lambert et al., 2017a, 2017b; Vélez-Juarbe & Valenzuela-Toro, 2019; Benites-Palomino et al., 2020, 2021; Ochoa et al., 2021; Collareta et al., 2021; Parham et al., 2022).

Distribución de las distintas faunas de odontocetos que se compararon en este trabajo.

Para nuestra sorpresa, los odontocetos panameños están más relacionados a especies encontradas en depósitos contemporáneos de la Formación Pisco en Perú. Lo cual nos sugiere que todavía persistía al menos cierto grado de intercambio faunístico entre el Océano Pacífico y el Mar Caribe. Esto es un poco sorprendente, ya que para este punto, el Paso Marino Centroamericano (Central American Seaway), el cual conectaba el Pacífico con el Caribe, era muy somero, ya resultando en la divergencia inicial de algunas especies (Jackson et al., 1993; Coates, 1999; O'Dea et al., 2016; Jaramillo, 2018). Dado el caso, es muy probable que las diferencias que observamos entre las especies hermanas de cetáceos de Panamá y Perú sea un ejemplo de especiación alopátrica como resultado de la reducción de esta conexión marina (Benites-Palomino et al., 2023). 

Los odontocetos de la Formación Pisco (Perú) y sus contrapartes de la Formación Chagres (Panamá).

Aún así, con todo lo que se ha publicado desde la primera publicación sobre fósiles de mamíferos marinos de Panamá (Uhen et al., 2010), queda mucho camino por recorrer. Hay que continuar explorando por toda la región del Caribe donde seguro hay un sinnúmero de fósiles que descubrir y estudiar para entender mejor la historia evolutiva de vertebrados marinos en la región. 

Aquí otra versión de la excelente reconstrucción de los odontocetos de Chagres, por el inigualable Jaime Bran. En orden de arriba hacia abajo: Isthminia panamensis, Scaphokogiinae indet., Piscolithax sp., Nanokogia isthmia, y cf. Acrophyseter sp.
Visiten su cuenta de instagram para ver otros de sus trabajos!

Pueden leer entradas previas sobre paleontología en Panamá en los siguientes enlaces:

A short trip to Panama

Return to Panama

Fossil Mammals of Panama

Return to the Caribbean Side of Panama

Return to the Caribbean Side of Panama, pt. 2

Whale Rescue in the Canal

Updates from Panama

Back to the Western Caribbean, Pt. 1

Back to the Western Caribbean, Pt. 2

Back to the Western Caribbean, Pt. 3

Nanokogia isthmia un nuevo cachalote fósil de Panamá


Literatura

Barnes, L. G. 1973. Praekogia cedrosensis, a new genus and species of fossil pygmy sperm whale from isla Cedros, Baja California, Mexico. Contributions in Science 247:1–20. 

Barnes, L. G. 1984. Fossil odontocetes (Mammalia: Cetacea) from the Almejas Formation, Isla Cedros, Mexico. Paleobios 42:1–46.

Barnes, L. G. 1998. The sequence of fossil marine mammal assemblages in Mexico. In O. Carranza-Castañeda and D. A. Córdoba-Méndez (eds.), Avances en Investigación: Paleontología de Vertebrados. Instituto de Investigaciones en Ciencias de la Tierra, Universidad Autónoma del Estado de Hidalgo, Mexico, Publicación Especial 1, p. 26–79.

Benites-Palomino, A., J. Vélez-Juarbe, R. Salas-Gismondi, and M. Urbina. 2020. Scaphokogia totajpe, sp. nov., a new bulky-faced pygmy sperm whale (Kogiidae) from the late Miocene of Peru. Journal of Vertebrate Paleontology 39:e1728538.

Benites-Palomino, A., J. Vélez-Juarbe, A. Collareta, D. Ochoa, A. Altamirano, M. Carré, M. J. Laime,  2021. Nasal compartmentalization in Kogiidae (Cetacea, Physeteroidea): insights from a new late Miocene dwarf sperm whale from the Pisco Formation. Papers in Palaeontology 7:1507–1524.

Benites-Palomino, A., J. Vélez-Juarbe, C. De Gracia, and C. Jaramillo. 2023. Bridging two oceans: small toothed cetaceans (Odontoceti) from the Late Miocene Chagres Formation, eastern Caribbean (Colon, Panama). Biology Letters 19:20230124.

Coates, A. G. 1999. Lithostratigraphy of the Neogene strata of the Caribbean coast from Limon, Costa Rica, to Colon, Panama. Bulletin of American Paleontology 357:17–38.

Collareta, A., O. Lambert, F. G. Marx, C. de Muizon, R. Varas-Malca, W. Landini, G. Bosio, E. Malinverno, K. Gariboldi, A. Gioncada, M. Urbina, and G. Bianucci. 2021. Vertebrate paleoecology of the Pisco Formation (Miocene, Peru): glimpses into the ancient Humboldt Current Ecosystem. Journal of Marine Science and Engineering 9:1188.

Cortés, D., C. De Gracia, J. D. Carrillo-Briceño, G. Aguirre-Fernández, C. Jaramillo, A. Benites-Palomino, and J. E. Atencio-Araúz. 2019. Shark-cetacean trophic interactions during the late Pliocene in the Central Eastern Pacific (Panama). Palaeontologia Electronica 22.2.49A:1–13.

Jackson, J. B., P. Jung, A. G. Coates, and L. S. Collins. 1993. Diversity and extinction of tropical American mollusks and emergence of the Isthmus of Panama. Science 260:1624–1626.

Jaramillo, C. 2018. Evolution of the Isthmus of Panama: biological, paleoceanographic and paleoclimatological implications. 

Lambert, O., G. Bianucci, and C. de Muizon. 2017a. Macroraptorial sperm whales (Cetacea, Odontoceti, Physeteroidea) from the Miocene of Peru. Zoological Journal of the Linnean Society 179:404–474.

Lambert, O., G. Bianucci, M. Urbina, and G. H. Geisler. 2017b. A new inioid (Cetacea, Odontoceti, Delphinida) from the Miocene of Peru and the origin of modern dolphin and porpoise families. Zoological Journal of the Linnean Society 179:919–946.

Muizon, C. de. 1984. Les vertébrés de la Formation Pisco (Pérou). Deuxième partie: Les Odontocètes (Cetacea, Mammalia) du Pliocène inférieur du Sud-Sacaco. Travaux de l'Institut Français d'Études Andines 27:1–188.

O'Dea, A., H. A. Lessios, A. G. Coates, R. I. Eytan, S. A. Restrepo-Moreno, A. L. Cione, L. S. Collins, A. de Queiroz, D. W. Farris, R. D. Norris, R. F. Stallard, M. O. Woodburne, O. Aguilera, M.-P. Aubry, W. A. Berggren, A. F. Budd, M. A. Cozzuol, S. E. Coppard, H. Duque-Caro, S. Finnegan, G. M. Gasparini, E. L. Grossman, K. G. Johnson, L. D. Keigwin, N. Knowlton, E. G. Leigh, J. S. Leonard-Pingel, P. B. Marko, N. D. Pyenson, P. G. Rachello-Dolmen, E. Soibelzon, L. Soibelzon, J. A. Todd, G. J. Vermeij, and J. B. C. Jackson. 2016. Formation of the Isthmus of Panama. Science Advances 2:e1600883.

Parham, J. F., J. A. Barron, and J. Velez-Juarbe. 2022. Middle and Late Miocene marine mammal assemblages from the Monterey Formation of Orange County, California. In I. Aiello, J. Barron, and C. Ravello (eds.), Understanding the Monterey Formation and Similar Biosiliceous Units Across Space and Time. Geological Society of America Special Paper 556:229–241.

Pyenson, N. D., C. S. Gutstein, J. F. Parham, J. P. Le Roux, C. Carreño Chavarría, A. Metallo, V. Rossi, H. Little, A. M. Valenzuela-Toro, J. Vélez-Juarbe, C. M. Santelli, D. Rubilar Rogers, M. A. Cozzuol, and M. E. Suárez. 2014. Repeated mass stranding of Miocene marine mammals from the Atacama of Chile point to sudden death at sea. Proceeding of the Royal Society B 281:20133316.

Pyenson, N. D., J. Vélez-Juarbe, C. S. Gutstein, H. Little, D. I. Vigil, and A. O'Dea. 2015. Isthminia panamensis, a new fossil inioid (Mammalia, Cetacea) from the Chagres Formation of Panama and the evolution of 'river dolphins' in the Americas. PeerJ 3:e1227.

Ochoa, D., R. Salas-Gismondi, T. J. DeVries, P. Baby, C. de Muizon, A. Altamirano, A. Barbosa-Espitia, D. A. Foster, K. Quispe, J. Cardich, D. Gutiérrez, A. Perez, J. Valqui, M. Urbina, and M. Carré. 2021. Late Neogene evolution of the Peruvian margin and its ecosystems: a synthesis from the Sacaco record. International Journal of Earth Sciences 110:995–1025. 

Uhen, M. D., A. G. Coates, C. A. Jaramillo, C. Montes, C. Pimiento, A. Rincón, N. Strong, and J. Vélez-Juarbe. 2010. Marine mammals from the Miocene of Panama. Journal of South American Earth Sciences 30:167–175.

Vélez-Juarbe, J., and A. M. Valenzuela-Toro. 2019. Oldest record of monk seals from the North Pacific and biogeographic implications. Biology Letters 15:20190108.

Vélez-Juarbe, J., A. R. Wood, C. De Gracia, and A. J. W. Hendy. 2015. Evolutionary patterns among living and fossil kogiid sperm whales: evidence from the Neogene of Central America. PLoS ONE 10(5):e0129186.

Vigil, D. I., and C. A. Laurito. 2014. Nuevos restos de un Odontoceti fósil (Mammalia: Cetacea, Physeteroidea) para el Mioceno Tardío de Panamá, América Central. Revista Geológica de América Central 50:213–217. 

Whitmore, F. C., Jr., and J. A. Kaltenbach. 2008. Neogene Cetacea of the Lee Creek Phosphate Mine, North Carolina. Virginia Museum of Natural History Special Publication 14:181–269.

Friday, October 7, 2022

Roedores endémicos del Caribe: una mirada cercana a la microestructura de los incisivos

 Esta semana ha salido una nueva publicación en el Journal of Mammalian Evolution donde junto con un nutrido grupo de colegas describimos la microestructura del esmalte de los incisivos de los roedores caviomorfos caribeños (Marivaux et al., 2022). Los lectores habituales de este blog recordarán que el tema de los roedores caribeños es uno que tocamos con cierta frecuencia, desde las diversas entradas sobre los roedores más antiguos de la región (Partes 1, 2 y 3) hasta un resumen de las diversas especies que han existido en Puerto Rico. Para los que quizás no estén tan familiarizados o necesiten un resumen, les daré un poco de contexto el cual también servirá para entender parte de los motivos detrás del nuevo estudio.

Mapa de distribución de especies actuales de jutías (modificado de Fabre et al., 2014). 

Actualmente en las Antillas existe un grupo de roedores endémicos pertenecientes a la subfamilia Capromyinae, coloquialmente conocidos como jutías. Aunque actualmente hay alrededor de 13 especies (ver mapa arriba), en el pasado, particularmente durante el periodo Cuaternario existían muchas más y gozaban de una distribución más amplia (Woods et al., 2001; Fabre et al., 2014; Courcelle et al., 2019). En adición a esto, existía dos grupos adicionales de roedores caviomorfos endémicos, los Heteropsomyinae y los "Heptaxodontidae" o "jutías gigantes" (Woods et al., 2001; MacPhee, 2009; Upham, 2017). Los Capromyinae y Heteropsomyinae son parte de una radiación endémica de "ratas espinosas" antillanas (Echimyidae), que aparecen en la región por primera vez en el Mioceno temprano de Cuba, representados por la especie Zazamys veronicae (MacPhee & Iturralde-Vinent, 1995). Sin embargo, la relación entre las "jutías gigantes" y otros grupos de roedores caviomorfos ha sido un tema de debate por mucho tiempo, resultando en distintas hipótesis sobre cuales son sus parientes actuales más cercanos (ver resumen en MacPhee, 2011).

Para añadirle a el tema de las "jutías gigantes", en 2020 describimos dos especies de roedores del Oligoceno temprano de Puerto Rico, Borikenomys praecursor y una segunda especie, parecida a Borikenomys, pero más grande (Marivaux et al., 2020). Los resultados del análisis filogenético de ese trabajo sugieren un parentesco entre Borikenomys y Elasmodontomys obliquus ambas especies a su vez cerca a la familia Dinomyidae y con Amblyrhiza inundata en una posición más basal, pero todos dentro del grupo conocido como Chinchilloidea. Mientras que los Capromyinae y Heteropsomyinae son parte de la familia Echimyidae en el grupo Octodontoidea. Elasmodontomys y Amblyrhiza son dos de las especies tradicionalmente clasificadas como parte de Heptaxodontidae ("jutías gigantes"). Por lo cual, nuestros resultado sugieren que Borikenomys y algunas de las "jutías gigantes" posiblemente representan una radiación endémica de Chinchilloidea que llegaron a la región a finales del Eoceno, hace unos 33 millones de años atrás. No obstante, el deseo de utilizar todas las fuentes de información morfológicas posibles nos llevó al trabajo que recién publicamos.

Relaciones evolutivas entre los roedores caviomorfos del Caribe. Octodontoidea (color vino) incluye a las jutías (Capromyinae + Heteropsomyinae), mientras que en azul se observa al clado Chinchilloidea, el cual incluye a Borikenomys praecursor y al menos dos de las "jutías gigantes" (Elasmodontomys obliquus y Amblyrhiza inundata). Modificado de Marivaux et al. (2020).

Para tratar de entender mejor las relaciones entre las distintas especies de roedores endémicos caribeños nos dimos la tarea de analizar la microestructura del esmalte de los dientes incisivos de los Capromyinae, Heteropsomyinae, Heptaxodontidae y Borikenomys (Marivaux et al., 2022). Este tipo de análisis requiere que los incisivos se corten longitudinalmente para luego examinar esa superficie utilizando un microscopio electrónico de barrido (scanning electron microscope), para así observar los detalles de la microestructura de la parte interna del esmalte.

Aquí se observa un incisivo cortado longitudinalmente y las zonas y subzonas del esmalte que se examinan en detalle a diferentes aumentos. Tomado de Marivaux et al. (2022).

Para que nuestro trabajo fuera lo más completo posible, utilizamos especímenes de varias colecciones para así tener representantes de la mayor cantidad de especies de roedores caviomorfos caribeños (actuales y extintos) como fuera posible, con un total de 18 especies. Decidimos estudiar la microestructura del esmalte ya que la misma tiene lo que nos referimos como señal filogenética. En otras palabras, la microestructura de los incisivos de roedores tiene una morfología específica y distintiva para cada grupo y nos puede dar una buena idea respecto a qué grupo pertenecen los especímenes que se están examinando. Esta es una herramienta muy útil, especialmente en casos donde se requiere información adicional o cuando solamente encontramos incisivos y no hay otros dientes. Y esto fue el caso en un trabajo previo, del 2014, donde haciendo este tipo de análisis logramos demostrar que los roedores caviomorfos ya estaban en las Antillas para el Oligoceno temprano (aquí hay más detalles sobre ese trabajo). 

Los caviomorfos presentan varios tipos de organización de los cristales de hidroxiapatita que conforman la parte interna del esmalte de los dientes. Los primeros dos tipos se clasifican como Sbt. 1 y Sbt. 2 incluyendo una etapa transicional que se le conoce como Sbt. 1-2. Estos tipos son los más plesiomórficos (o primitivos), mientras que el tercero, Sbt. 3 es el más derivado o avanzado y es el arreglo con mayor resistencia estructural. Entre los roedores caviomorfos los tipos Sbt. 1 y 2 se ven en tres grupos: Erethizontoidea (e.g. coendúes y puercoespines), Cavioidea (e.g. capibaras y agutíes) y Chinchilloidea (e.g. pacaranas y chinchillas); mientras que el Sbt. 3 es exclusivo de los Octodontoidea (e.g. jutías y ratas espinosas). Cada tipo de microestructura de esmalte aparece muy temprano durante la historia evolutiva de cada grupo, prácticamente, cada grupo ya está diferenciado desde el Eoceno-Oligoceno (Martin, 2004, 2005; Boivin et al., 2019).

Los resultados de nuestro estudio muestran que los Capromyinae (e.g. Isolobodon portoricensis y Capromys pilorides) y los Heteropsomyinae (e.g. Boromys torrei), tienen microestructura de esmalte tipo Sbt. 3 (ver figura abajo). Esto es consistente con su clasificación dentro de Octodontoidea y con resultados de otros estudios morfológicos y moleculares.

Detalle de la microestructura de esmalte de varias especies de caviomorfos caribeños, específicamente los Capromyinae Isolobodon portoricensis y Capromys pilorides, y Heteropsomyinae, representado por Boromys torrei. En las imágenes a la derecha se puede apreciar el mayor grado de entrelazamiento de los cristales de hidroxiapatita que forman el esmalte (modificado de Marivaux et al., 2022).

Mientras tanto, en los "Heptaxodontidae" la microestructura del esmalte observada es de los tipos Sbt.1 en Clidomys sp., y Sbt. 1-2 (intermedio) en Elasmodontomys obliquus y Amblyrhiza sp., el cual también ocurre en Borikenomys praecursor (ver figura abajo). Esta morfología, junto con la de sus molares, sugiere que estas especies están emparentadas y pertenecen dentro de Chinchilloidea, lo cual es congruente con el análisis filogenético que publicamos hace unos años (Marivaux et al., 2020). Adicionalmente, Clidomys y Amblyrhiza también comparten características de la región auditiva con otros Chinchilloidea. 

Detalle de la microestructura de esmalte de varias especies de caviomorfos caribeños, específicamente los "Heptaxodontidae" Elasmodontomys obliquus Amblyrhiza sp., y Borikenomys praecursor. En las imágenes a la derecha se puede observar la organización menos compleja de los cristales de hidroxiapatita que forman el esmalte (modificado de Marivaux et al., 2022).

Sin embargo, estos resultados contrastan con los de un estudio de ADN antiguo (ADNa) donde sugieren que Elasmodontomys es un Capromyinae (Woods et al., 2021), lo cual implicaría que las complejas características dentales compartidas entre Borikenomys, ClidomysElasmodontomys y Amblyrhiza evolucionaron convergentemente. Implica además que en Elasmodontomys ocurrió una reversión evolutiva en la microestructura de los incisivos, de tener un antepasado con Sbt. 3 a tener la versión más plesiomórfica y estructuralmente menos estable de Sbt. 1-2. Esto difiere del patrón general que se observa en los Octodontoidea (incluyendo Capromyinae), los cuales presentan microestructura tipo Sbt. 3 desde finales del Eoceno y sería un tipo de reversión evolutiva sin precedente, ya que la presión selectiva es a reenforzar los incisivos, no a debilitarlos.

Otra alternativa a esta discrepancia entre resultados morfológicos y moleculares es que sea el resultado de un error de muestreo en el estudio de Woods et al. (2021). La probabilidad de esto se debe a que los restos de Elasmodontomys se encuentran frecuentemente en la misma localidad que los de Heteropsomys (e.g. McFarlane, 1999; Vélez-Juarbe & Miller, 2007), e incluso Isolobodon (pers. obs.). Partiendo de esto, la mejor forma de resolverlo será extraer ADNa de restos que sin duda sean de Elasmodontomys (e idealmente otras especies de "jutías gigantes"). También hay que concentrar esfuerzos de campo para encontrar fósiles que ayuden a completar el registro fósil de los roedores caviomorfos caribeños. 


Literatura

Courcelle, M., M.-K. Tilak, Y. L. R. Leite, E. J. P. Douzery, and P.-H. Fabre. 2019. Digging for the spiny rat and hutia phylogeny using a gene capture approach, with the description of a new mammal subfamily. Molecular Phylogenetics and Evolution 136:241–253.

Fabre, P.-H., J. T. Vilstrup, M. Raghavan, C. Der Sarkissian, E. Willerslev, E. J. P. Douzery, and L. Orlando. 2014. Rodents of the Caribbean: origin and diversification of hutias unravelled by next-generation museomics. Biology Letters 10:20140266.

MacPhee, R. D. E. 2009. Insulae infortunatae: establishing a chronology for Late Quaternary mammal extinctions in the West Indies. In: Haynes, G. (ed.) American Megafaunal Extinctions at the End of the Pleistocene. Springer, Dordrecht, pp. 169–193.

MacPhee, R. D. E. 2011. Basicranial morphology and relationships of Antillean Heptaxodontidae (Rodentia, Ctenohystrica, Caviomorpha). Bulletin of the American Museum of Natural History 363:1–70.

MacPhee, R. D. E. and M. A. Iturralde-Vinent. 1995. Origin of the Greater Antillean land mammal fauna, 1: new Tertiary fossils from Cuba and Puerto Rico. American Museum Novitates 3141:1–30.

Marivaux, L., L. W. Viñola-López, M. Boivin, L. Da Cunha, P.-H. Fabre, R. Joannes-Boyau, G. Maincent, P. Münch, N. S. Stutz, J. Vélez-Juarbe, and P.-O. Antoine. 2022. Incisor enamel microstructure of West Indian caviomorph hystricognathous rodents (Octodontoidea and Chinchilloidea). Journal of Mammalian Evolution. DOI: 10.1007/s10914-022-09631-7

Marivaux, L., J. Vélez-Juarbe, G. Merzeraud, F. Pujos, L. W. Viñola López, M. Boivin, H. Santos-Mercado, E. J. Cruz, A. Grajales, J. Padilla, K. I. Vélez-Rosado, M. Philippon, J.-L. Léticée, P. Münch, and P.-O. Antoine. 2020. Early Oligocene chinchilloid caviomorphs from Puerto Rico and the initial rodent colonization of the West Indies. Proceedings of the Royal Society B 287:20192806.

Martin, T. 2004. Incisor enamel microstructure of South America's earliest rodents: implication for caviomorph origin and diversification. In: Campbell, K. E. (ed.) The Paleogene Mammalian Fauna of Santa Rosa, Amazonian Peru. Natural History Museum of Los Angeles County Science Series 40:131–140.

Martin, T. 2005. Incisor enamel schmelzmuster diversity in South America's oldest rodent fauna and early caviomorph history. Journal of Mammalian Evolution 12:405–417.

McFarlane, D. E. 1999. Late Quaternary fossil mammals and last occurrence dates from caves at Barahona, Puerto Rico. Caribbean Journal of Science 35:238–248.

Upham, N. S. 2017. Past and present of insular Caribbean mammals: understanding Holocene extinctions to inform modern biodiversity conservation. Journal of Mammalogy 98:913–917.

Vélez-Juarbe, J., and T. E. Miller. 2007. First report of a Quaternary crocodylian from a cave deposit in northern Puerto Rico. Caribbean Journal of Science 43:273–277.

Vélez-Juarbe, J., T. Martin, R. D. E. MacPhee, and D. Ortega-Ariza. 2014. The earliest Caribbean rodents: Oligocene caviomorphs from Puerto Rico. Journal of Vertebrate Paleontology 34:157–163.

Woods, C. A., R. Borroto-Páez, and C. W. Kilpatrick. 2001. Insular patterns and radiations of West Indian rodents. In: Woods, C. A., & Sergile, F. E. (eds.) Biogeography of the West Indies: Patterns and Perspectives. CRC Press, Boca Raton, pp. 335–353.

Woods, R., I. Barnes, S. Brace, and S. T. Turvey. 2021. Ancient DNA suggests single colonisation and within-archipelago diversification of Caribbean caviomorph rodents. Molecular Biology and Evolution 38:84–95.

Tuesday, January 18, 2022

El Primer Gigante de los Mares: Cymbospondylus youngorum

Cuando pensamos en gigantes marinos, usualmente lo primero que nos viene a la mente son la ballenas, las cuales incluyen el animal más grande de nuestro planeta, la ballena azul (Balaenoptera musculus), que puede alcanzar hasta un largo de 29 metros (95 pies). Durante el Mesozoic, la llamada 'Era de los Dinosaurios' los océanos también tenían gigantes marinos, principalmente ictiosaurios, pliosaurios y mosasaurios. De estos tres grupos de reptiles marinos del Mesozoico, los ictiosaurios se llevan el record por alcanzar los tamaños más grandes. En mi colaboración más reciente, publicada a finales de diciembre en Science, describimos el primer ictiosaurio gigante, quien a la vez es el primer animal que se puede considerar gigante en toda la historia de vida en el planeta. La nueva especie, llamada Cymbospondylus youngorum, fue descubierta en depósitos del Triásico Medio (~242–247 millones de años) en el centro de Nevada y es parte de una fauna, conocida como Fossil Hill Fauna, que incluye siete especies adicionales de ictiosaurios y el pistorauroideo Augustasaurus hagdorni (Leidy, 1868; Merriam, 1906, 1910; Sander et al., 1997; Schmitz et al., 2004; Fröbisch et al., 2006; Fröbisch et al., 2013; Klein et al., 2020; Sander et al., 2021).

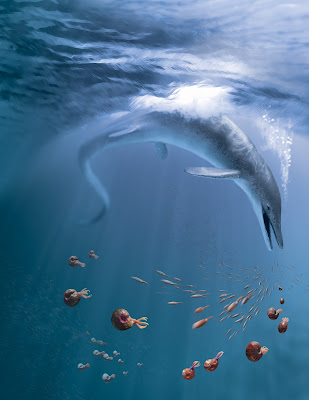
Reconstrucción de Cymbospondylus youngorum hecha por mi talentosa colega Stephanie Abramowicz (aquí pueden ver algunos de sus otros trabajo).

Con un cráneo de alrededor dos metros de largo, estimamos que el cuerpo de Cymbospondylus youngorum alcanzaba un largo de alrededor de 17 metros, lo cual es cerca al tamaño de los cachalote (Physeter macrocephalus), y unos cuantos metros más pequeño que el icitiosaurio nombrado más grande, Shonisaurus sikanniensis, que se estima medía alrededor de 21 metros (Nicholls and Manabe, 2004; Sander et al., 2021). En adición a S. sikanniensis, se han encontrado restos de otros ictiosaurios más grandes, con tamaños que se acercan a los 25 metros (Lomax et al., 2018), pero tanto estos, como S. sikanniensis, son del Triásico tardío, o sea, geocronológicamente más jóvenes que C. youngorum.
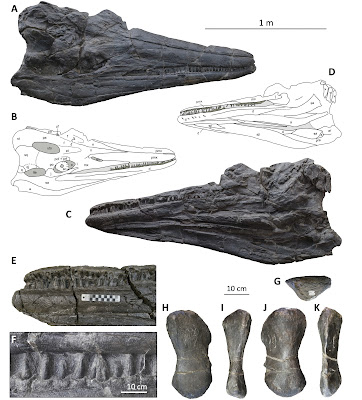
El holotipo de Cymbospondulus youngorum: vistas dorsal (A-B) y ventral (C-D) del cráneo y mandíbula; detalle de la dentadura (E-F), y húmero (H-K). El cráneo se encuentra actualmente en exhibición en el Museo de Historia Natural del Condado de Los Angeles.

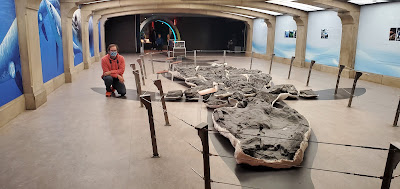
El holotipo de Shonisaurus sikanniensis, el cual tuve la oportunidad de ver en una visita reciente al Royal Tyrrell Museum en Alberta, Canada.

La Fauna de Fossil Hill representa el conjunto más diverso de ictiosarios que se conoce al momento, con especies que van desde los dos a 17 metros de largo. Esto tomó lugar alrededor de 246 millones de años atrás, apenas unos seis millones después de la extinción Permo-Triásica, (la peor de la historia y donde se extinguió alrededor de 90% de las especies en el planeta) e, interesantemente, unos tres millones de años desde que aparecen los primeros ictiosaurios . Todo esto sugiere una pronta recuperación en los océanos y que los icitiosaurios se diversificaron y alcanzaron tamaños enormes rápidamente. Con esta información en mano, decidimos explorar en mayor detalle la estructura e interacciones tróficas (quién se come a quién) en este antiguo ecosistema y tazas evolutivas en los ictiosaurios.

Además de los reptiles marinos, la Fauna de Fossil Hill incluye peces, conodontes, ammonites y posiblemente coleoideos (cefalópodos sin concha). Una de las preguntas principales que nos hicimos sobre este ecosistema antiguo fue cuan estable era este ecosistema dominado por depredadores (i.e. los ictiosaurios) aún cuando todavía no existían los productores primarios que encontramos actualmente en los océanos. Para contestar esta pregunta estimamos la masa corporal, número de individuos y requerimientos energéticos de las especies de la Fauna de Fossil Hill y usamos esa información para explorar distintos modelos computacionales de flujo de energía para determinar la estabilidad de esa red trófica. 

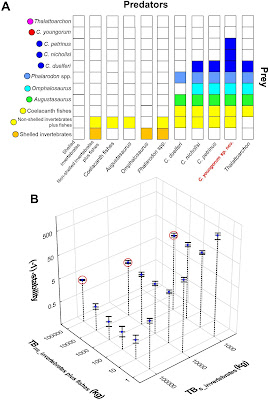
Arriba, matriz de interacciones tróficas (quién se come a quién) que utilizamos para establecer los modelos de flujo de energía entre los miembros de la Fauna de Fossil Hill.
Abajo, gráfica con los valores obtenidos con los distintos modelos de red trófica que usamos. Los distintos resultados son en base a los valores que estimamos para el total de la biomasa para peces e invertebrados con partes duras. 

Los resultados de este análisis confirmaron que el ecosistema de la Fauna de Fossil Hill si era estable, aún si solo consideramos a los amonites como los principales productores primarios y que la cadena alimenticia era más corta en comparación a las actuales. Otro aspecto interesante de esta parte de nuestro estudio es que los resultados sugieren que había comida suficiente para la presencia (hipotética) de una especie adicional de ictiosaurio gigante que consumiera alimento a granel (bulk feeding/filter feeding), como hacen los misticetos (ballenas barbadas).

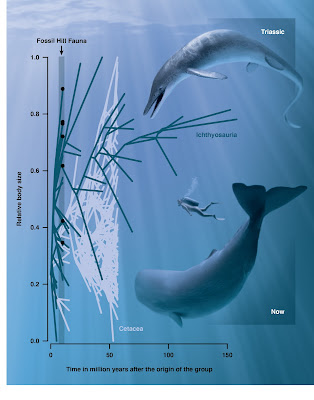
El otro análisis que hicimos fue comparar las tazas de evolución de gigantismo entre ictiosaurios y cetáceos. Para esto hicimos unos análisis utilizando filogenias calibradas y estimados de tamaño de cuerpo para la mayor cantidad de especies posible de ambos grupos, que en el caso de los ictiosaurios logramos incluir 48 especies y 269 especies de cetáceos. El resultado principal de este análisis fue concluir que los ictiosaurios alcanzaron tamaños gigantes bien temprano y bien rápido en su historia evolutiva! El tiempo transcurrido desde su origen al momento que alcanzaron tamaños gigantes fue mucho más corto que en los cetáceos, que como sabemos, también alcanzaron tamaños gigantes, pero a lo largo de un periodo más largo de tiempo. En ambos grupos se detectaron aumentos en el tamaño de cuerpo en más de una ocasión, y en algunos grupos de cetáceos también observamos disminución en tamaño, particularmente en los Kogiidae (los cachalotes pigmeos y parientes extintos). 

Gráfica comparando la taza de evolución de tamaño de cuerpo entre ictiosaurios (líneas azules) y cetáceos (líneas blancas). El eje 'Y' representa los valores de tamaño de cuerpo (aumentan hacia arriba), mientras que el eje 'X' es el tiempo transcurrido (en millones de años) desde el origen de los grupos. Aquí también se puede ver la similitud en tamaño entre Cymbospondylus youngorum (arriba a la derecha) y un cachalote (abajo a la derecha).

Previamente se habían publicado trabajos enfocados en la evolución de gigantismo en los misticetos (ballenas barbadas) y nuestros resultados son congruentes con los de ese estudio (Slater et al., 2017). Sin embargo, nuestro trabajo es el primero en examinar la evolución de tamaño de cuerpo que incluye todos los grupos de cetáceos, desde los más antiguos hasta los actuales. Nuestros resultados sugieren además que la evolución de gigantismo en los cetáceos está relacionado con cambios en la alimentación. En el caso de los misticetos parece relacionarse con la pérdida de dientes y alimentación a granel (bulk feeding), mientras que en los odontocetos con alimentación raptorial y búsqueda de presas a grandes profundidades.

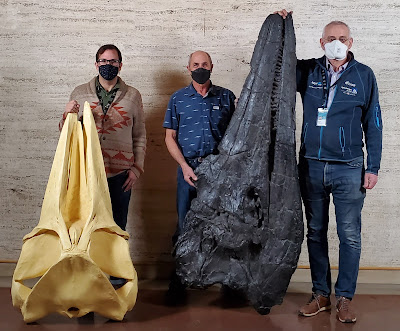
De izquierda a derecha: yo con una réplica del cráneo de un rorcual Minke (Balaenoptera acutorostrata), al centro Tom Young quien junto con su esposa son los fundadores de Great Basin Brewing Co. y a la derecha Martin Sander (University of Bonn), uno de los autores principales del trabajo, con una réplica del cráneo de Cymbospondylus youngorum. El epíteto específico "youngorum" es en honor a los Young por su apoyo a los proyecto de Martin en Nevada y a nuestro museo.

Como investigadores frecuentemente nos gusta comparar ictiosaurios con cetáceos, así que este proyecto fue muy satisfactorio ya que logramos investigar y comparar detalladamente algunos de los aspectos evolutivos que comparten ambos grupos. Para este proyecto utilizamos una combinación de métodos paleontológicos tradicionales (descripciones, medidas y observaciones, etc.) y modelos computacionales lo cual facilitó la exploración de patrones macroevolutivos usando el registro fósil de estos tetrápodos marinos. Nuestros resultados, como ya mencioné, fueron muy interesantes y no hubiese sido posible sin el diverso equipo de expertos en nuestro grupo de trabajo. Aún así, este fue un primer paso ya que queda mucho más por conocer de estos antiguos ecosistemas marinos y evolución de tamaño de cuerpo en otros grupos de vertebrados que se readaptaron a una vida en el mar.

Referencias

Fröbisch, N. B., P. M. Sander, and O. Rieppel. 2006. A new species of Cymbospondylus (Diapsida, Ichthyosauria) from the Middle Triassic of Nevada and a re-evaluation of the skull osteology of the genus. Zoological Journal of the Linnean Society 147:515–538.

Fröbisch, N. B., J. Fröbisch, P. M. Sander, L. Schmitz, and O. Rieppel. 2013. Macropredatory ichthyosaur from the Middle Triassic and the origin of modern trophic networks. Proceedings of the National Academy of Sciences 110(4):1393–1397.

Klein, N., L. Schmitz, T. Wintrich, and P. M. Sander. 2020. A new cymbospondylid ichthyosaur (Ichthyosauria) from the Middle Triassic (Anisian) of the Augusta Mountains, Nevada, USA. Journal of Systematic Palaeontology 18(14):1167–1191.

Leidy, J. 1868. Notice of some reptilian remains from Nevada. Proceedings of the Philadelphia Academy of Sciences 20:177–178.

Lomax, D. R., P. De la Salle, J. A. Massare, and R. Gallois. 2018. A giant late Triassic ichthyosaur from the UK and a reinterpretation of the Aust Cliff 'dinosaurian' bones. PLoS ONE 13(4):e0194742.

Merriam, J. C. 1906. Preliminary note on a new marine reptile from the Middle Triassic of Nevada. University of California Publications–Bulletin of the Department of Geology 5:5–79.

Merriam, J. C. 1910. The skull and dentition of a primitive ichthyosaurian from the Middle Triassic. University of California Publications–Bulletin of the Department of Geology 5:381–390.

Nicholls, E. L., and M. Manabe. 2004. Giant ichthyosaurs of the Triassic—a new species of Shonisaurus from the Pardonet Formation (Norian:late Triassic) of British Columbia. Journal of Vertebrate Paleontology 24:838–849.

Sander, P. M., O. C. Rieppel, and H. Bucher. 1997. A new pistosaurid (Reptilia:Sauropterygia) from the Middle Triassic of Nevada and its implications for the origin of the plesiosaurs. Journal of Vertebrate Paleontology 17(3):526–533.

Sander, P. M., E. M. Griebeler, N. Klein, J. Velez-Juarbe, T. Wintrich, L. J. Revell, and L. Schmitz. 2021. Early giant reveals faster evolution of large size in ichthyosaurs than in cetaceans. Science 374:eabf5787.

Schmitz, L., P. M. Sander, G. W. Storrs, and O. Rieppel. 2004. New Mixosauridae (Ichthyosauria) from the Middle Triassic of the Augusta Mountains (Nevada, USA) and their implications for mixosaur taxonomy. Palaeontographica Abt. A 270:133–162.

Slater, G. J., J. A. Goldbogen, and N. D. Pyenson. 2017. Independent evolution of baleen whale gigantism linked to Plio-Pleistocene ocean dynamics. Proceedings of the Royal Society B 284:20170546.

Friday, December 24, 2021

The First Ocean Giant

When we think of ocean giants we usually think of whales, which indeed include the largest animal known to have lived in our planet, the blue whale (Balaenoptera musculus) reaching lengths of up to 29 meters (95 feet). Things were not so different during the Mesozoic, the so-called 'Age of Dinosaurs', when the oceans had various groups of large marine tetrapods, mainly ichthyosaurs, pliosaurs and mosasaurs. Amongst these different groups of Mesozoic marine reptiles, ichthyosaurs hold the record for the largest to have swam in the Mesozoic seas. Now, in my most recent paper published yesterday in Science, we describe the first giant ichthyosaur, which also turned out to be the first giant vertebrate in Earth's history. The new species, named Cymbospondylus youngorum, was discovered in Middle Triassic (~242-247 million years ago) deposits in central Nevada and is part of an icthyosaur-rich fauna (AKA Fossil Hill Fauna) that includes at least seven other species of ichthyosaurs and the pistosauroid Augustasaurus hagdorni (Leidy, 1868; Merriam, 1906, 1910; Sander et al., 1997; Schmitz et al., 2004; Fröbisch et al., 2006; Fröbisch et al., 2013; Klein et al., 2020; Sander et al., 2021).

Life reconstruction of Cymbospondylus youngorum by my very talented colleague Stephanie Abramowicz (you should check out her other work here).

With a skull that's about two meters long, Cymbospondylus youngorum has an estimated body length of about 17 meters which is close to that of extant sperm whales (Physeter macrocephalus), and several meters smaller than the largest named ichthyosaur Shonisaurus sikanniensis which had a body length of 21 meters (Nicholls and Manabe, 2004; Sander et al 2021). There are fragmentary remains of larger ichthyosaurs, with body lengths estimates close to 25 meters (Lomax et al., 2018), but these, as well as S. sikanniensis, are from late Triassic deposits, hence geochronologically younger than C. youngorum.
The holotype of Cymbospondulus youngorum; dorsal (A-B) and ventral (C-D) views of the skull; closeup of the teeth (E-F), and humerus (H-K). The skull is currently on exhibit at the Natural History Museum of Los Angeles County.

The holotype of Shonisaurus sikanniensis, seen on a recent visit to the Royal Tyrrell Museum in Alberta, Canada.

The Fossil Hill Fauna represents the most diverse ichthyosaur assemblage known, with species ranging from 2 to 17 meters. Interestingly, this is taking place about 246 million years ago, a mere six million years after the Permo-Triassic extinction, when about 90% of organism in our planet became extinct, and 3 million years after the appearance of the first ichthyosaurs. This suggest a speedy recovery for life in the oceans, and very fast diversification and body size increase in ichthyosaurs, and made us wonder about the structure and trophic interactions in this ancient ecosystem.

Besides the marine tetrapods, the Fossil Hill Fauna includes fishes, conodonts, ammonoids and most likely coleoids (shell-less cephalopods). One of the big questions with regards to this ancient ecosystem was, how sustainable was this predator-rich environment in the absence of modern primary producers? To answer this we explored energy flux models by estimating body masses, number of individuals and energy requirements for the Fossil Hill Fauna to test food web stability. 

Top, trophic interaction matrix used for modeling energy flux amongst members of the Fossil Hill Fauna. Bottom, graphic showing values for each different food web models. Variation between the different models are based on different estimates of total biomass for "shelled invertebrates and "fish". (See our supplementary material for a more detailed explanation of the models.)

The short answer is yes, the Fossil Hill Fauna was stable, even if taking the ammonites as the sole primary producers. More interestingly, our results suggest that this fauna could still sustain additional marine tetrapods, including a hypothetical filter or bulk feeding ichthyosaur!

Our other big analysis was to compare body size evolution in ichthyosaurs and whales. For this we used time-calibrated phylogenies and body size datasets for both groups to explore body size evolution over time in these two, somewhat similar, groups of secondarily aquatic tetrapods. The big takeaway from our analysis is that ichthyosaurs got really big, really early in their evolutionary history, at a rate unmatched by cetaceans which got big at slower rates. Body size increases occurred multiple times in both groups, and we also detected body size decreases in some cetacean lineages, such as kogiids (pygmy and dwarf sperm whales and their extinct relatives). 

Comparison of body size evolution in ichthyosaurs vs cetaceans. The 'Y' axis shows relative body size (greater towards the top) and the 'X' axis is time since the origin of the different groups.

Previous work on cetacean body size evolution had focused on mysticetes (baleen whales), and our results are congruent with those studies (Slater et al., 2017). However, this was a first take on body size evolution on cetaceans as a whole, with some interesting results for odontocetes. Broadly, the evolution of large body sizes in cetaceans seems to be linked to feeding specializations, loss of teeth and bulk feeding in mysticetes and raptorial feeding and deep diving in odontocetes.

From left to right: myself with a cast of a Minke whale (Balaenoptera acutorostrata) skull, Tom Young and lead author Martin Sander (University of Bonn) with a cast of the skull of Cymbospondylus youngorum. The specific epithet of the new species is after Tom and his wife Bonda owners of Great Basin Brewing Co., and supporters of Martin's work in Nevada.

As researcher we often compare ichthyosaurs and cetaceans, so this project was extremely satisfying as we were able to really dive into some of the overlapping aspects of their evolutionary history. Our approach combined traditional paleontological methods with computational modeling bringing together a group of experts in different fields which allowed us to explore macroevolutionary patterns in these groups. While our results are very exciting, this work is a stepping stone as there is still a lot to understand about ancient marine ecosystems and body size evolution across other groups of secondarily aquatic tetrapods. 

Literature Cited

Fröbisch, N. B., P. M. Sander, and O. Rieppel. 2006. A new species of Cymbospondylus (Diapsida, Ichthyosauria) from the Middle Triassic of Nevada and a re-evaluation of the skull osteology of the genus. Zoological Journal of the Linnean Society 147:515–538.

Fröbisch, N. B., J. Fröbisch, P. M. Sander, L. Schmitz, and O. Rieppel. 2013. Macropredatory ichthyosaur from the Middle Triassic and the origin of modern trophic networks. Proceedings of the National Academy of Sciences 110(4):1393–1397.

Klein, N., L. Schmitz, T. Wintrich, and P. M. Sander. 2020. A new cymbospondylid ichthyosaur (Ichthyosauria) from the Middle Triassic (Anisian) of the Augusta Mountains, Nevada, USA. Journal of Systematic Palaeontology 18(14):1167–1191.

Leidy, J. 1868. Notice of some reptilian remains from Nevada. Proceedings of the Philadelphia Academy of Sciences 20:177–178.

Lomax, D. R., P. De la Salle, J. A. Massare, and R. Gallois. 2018. A giant late Triassic ichthyosaur from the UK and a reinterpretation of the Aust Cliff 'dinosaurian' bones. PLoS ONE 13(4):e0194742.

Merriam, J. C. 1906. Preliminary note on a new marine reptile from the Middle Triassic of Nevada. University of California Publications–Bulletin of the Department of Geology 5:5–79.

Merriam, J. C. 1910. The skull and dentition of a primitive ichthyosaurian from the Middle Triassic. University of California Publications–Bulletin of the Department of Geology 5:381–390.

Nicholls, E. L., and M. Manabe. 2004. Giant ichthyosaurs of the Triassic—a new species of Shonisaurus from the Pardonet Formation (Norian:late Triassic) of British Columbia. Journal of Vertebrate Paleontology 24:838–849.

Sander, P. M., O. C. Rieppel, and H. Bucher. 1997. A new pistosaurid (Reptilia:Sauropterygia) from the Middle Triassic of Nevada and its implications for the origin of the plesiosaurs. Journal of Vertebrate Paleontology 17(3):526–533.

Sander, P. M., E. M. Griebeler, N. Klein, J. Velez-Juarbe, T. Wintrich, L. J. Revell, and L. Schmitz. 2021. Early giant reveals faster evolution of large size in ichthyosaurs than in cetaceans. Science 374:eabf5787.

Schmitz, L., P. M. Sander, G. W. Storrs, and O. Rieppel. 2004. New Mixosauridae (Ichthyosauria) from the Middle Triassic of the Augusta Mountains (Nevada, USA) and their implications for mixosaur taxonomy. Palaeontographica Abt. A 270:133–162.

Slater, G. J., J. A. Goldbogen, and N. D. Pyenson. 2017. Independent evolution of baleen whale gigantism linked to Plio-Pleistocene ocean dynamics. Proceedings of the Royal Society B 284:20170546.

Thursday, July 15, 2021

Los roedores más antiguos del Caribe, Parte 3!!

Nuestro descubrimiento más reciente ha salido publicado en la revista científica Papers in Palaeontology, como parte de los resultados de las excavaciones en Puerto Rico durante los últimos dos años. Este nuevo descubrimiento se trata de una especie nueva de roedor al cual nombramos como Caribeomys merzeraudi*. Esta es la tercera especie de roedor endémico que habitaba en Puerto Rico  alrededor de 29 millones de años. Sin embargo, distinto a todos los otros roedores endémicos, vivos o extintos de la región, este nuevo roedor representa un grupo nunca antes descubierto en las Antillas. 
*Esta nueva especie esta dedicada a la memoria de nuestro amigo y colega Gilles Merzeraud en reconocimiento a su invaluable contribución sobre la localidad donde descubrimos a Caribeomys.

Cráneo de un roedor geomorfo y los dientes que encontramos en la Formación San Sebastian.

Caribeomys merzeraudi (raton caribeño de Merzeraud) pertenece a un grupo de roedores conocido como Geomorpha o geomorfos, que actualmente incluye a las ratas de abazones o tuzas (pocket gophers) y a las ratas y ratones canguro. Los geomorfos se originan en Norteamérica en el Eoceno medio (entre 37-47 millones de años) donde evolucionaron aislados en ese continente hasta lograr dispersarse hacia América del Sur, luego del cierre del Paso Marino Centroamericano hace ~3 millones de años y así formando parte del Gran Intercambio Biótico Americano. ¿Pero cómo llegó esta especie de geomorfo a Puerto Rico?

Un Roedor Norteamericano en el Caribe
Debido a la falta de conexión terrestre entre América del Norte con Puerto Rico o alguna otra isla de las Antillas* sugiere que Caribeomys debió llegar de forma aleatoria vía dispersión transoceánica desde Norteamérica en algún momento a finales del Eoceno (Marivaux et al., 2021). Este tipo de evento de dispersión, aunque suene poco común, ha ocurrido en múltiples ocaciones en diversos grupos. Por ejemplo, la presencia de solenodontes (las musarañas endémicas caribeñas: Nesophontes spp. y Solenodon spp.) y salamandras en el Mioceno medio de La Española también se explica mediante este tipo dispersión (Roca et al., 2004; Brace et al., 2016; Sato et al., 2016; Poinar & Wake, 2015). Otros ejemplos son los orígenes de los roedores caviomorfos y primates suramericanos cuyos ancestros se dispersaron de forma similar desde África hacia América del Sur (Antoine et al., 2012; Bond et al., 2015). Esto también explica la llegada de primates a Panamá durante el Mioceno temprano, casi 20 millones de años previo al cierre del Paso Marino Centroamericano (Bloch et al., 2016).
*La única excepción es Jamaica, cuya historia geológica es un tanto distinta y durante parte del Eoceno estuvo unida a Centroamérica (Robinson, 1994; Iturralde-Vinent & MacPhee, 1999).
Mapa paleogeográfico del Caribe, Norte y Sur América, mostrando la falta de conexión con América del Norte a finales del Eoceno y comienzos del Oligoceno (~34 Ma; Marivaux et al., 2021).

La  descripción de la nueva especie Caribeomys merzeraudi consiste de dos dientes diminutos que fueron colectados en la Formación San Sebastian en el noroeste de Puerto Rico. En los dientes se observan características que lo identifican como un geomorfo, además se observa el arreglo de algunas cúspides de las muelas y un esmalte inusualmente grueso. Estas características únicas sugieren que Caribeomys llegó a la isla incluso previo a la llegada de roedores caviomorfos a finales del Eoceno (~33.9 Ma). Los dientes de Caribeomys proviene de la misma unidad donde encontramos el dugongo Priscosiren atlantica y los restos de los roedores caviomorfos más antiguos del Caribe: los Dinomyidae Borikenomys praecursor y una segunda especie aún sin nombrar (Velez-Juarbe & Domning, 2014; Velez-Juarbe et al., 2014; Marivaux et al., 2020). Esta unidad es parte de una secuencia que representa ambientes terrestres y marinos muy cercanos a la costa depositados entre 29.17-29.78 millones de años atrás (Ortega-Ariza et al., 2015) en la cual se han descubierto restos de otros vertebrados, invertebrados y plantas (ver ilustración abajo).
Sección estratigráfica de la Formación San Sebastián donde se observan las unidades donde se han descubierto fósiles y tomado muestras para obtener edades radiométricas. La columna está modificada del trabajo de Marivaux et al. (2020) a la cual se le añadió algunos de los descubrimientos más relevantes (Velez-Juarbe et al., 2007, 2014; Velez-Juarbe & Domning, 2014; Herrera et al., 2014; Blackburn et al., 2020).

Basándonos en el tamaño de los dientes, estimamos que Caribeomys tenía un peso de alrededor de 100 gramos (poco menos de 1/4 de libra; Marivaux et al., 2021). En contraste, Borikenomys tenía un peso cercano a los 1800 gramos (~4 libras), mientras que la tercera especie de roedor encontrada en esta unidad se acercaba a los 13,600 gramos (~30 libras). Con el descubrimiento de Caribeomys podemos concluir que durante el Oligoceno temprano en Puerto Rico existían al menos tres especies de roedores endémicos. Hasta poco antes y principio de la llegada de los primeros humanos a las Antillas también existían múltiples especies de roedores endémicos en la isla, incluyendo un descendiente de Borikenomys.
Localidad donde se descubrieron los dientes de Caribeomys merzeraudi y los dinomiidos de la Formación San Sebastián. Las siluetas representan la diferencia en tamaño entre las distintas especies.

Caribeomys se convierte en la adición más reciente a la fauna del Oligoceno de Puerto Rico y el Caribe. Sin embargo encontrar estos dientes tan diminutos no fue fácil, ya que para encontrarlos tuvimos que recurrir a lavar y tamizar una gran cantidad de sedimento de la capa fosilífera para luego pasar muchas horas más observando cantidades pequeñas del sedimento residual bajo un microscopio. 
Los colegas Lázaro Viñola López (University of Florida) y Laurent Marivaux (Université de Montpellier) examinando sedimento residual en busca de dientes diminutos durante la campaña de campo de 2019.


References

Antoine, P.-O., L. Marivaux, D. A. Croft, G. Billet, M. Ganerød, C. Jaramillo, T. Martin, M. J. Orliac, J. Tejada, A. J. Altmirano, F. Duranthon, G. Fanjat, S. Rousse, and R. Salas Gismondi. 2012. Middle Eocene rodents from Peruvian Amazonia reveal the pattern and timing of caviomorph origins and biogeography. Proceedings of the Royal Society B 279:1319–1326.

Blackburn, D. C., R. M. Keefe, M. C. Vallejo-Pareja, and J. Vélez-Juarbe. 2020. The earliest record of Caribbean frogs: a fossil coquí from Puerto Rico. Biology Letters 16:20190947.

Bloch, J. I., E. D. Woodruff, A. R. Wood, A. F. Rincon, A. R. Harrington, G. S. Morgan, D. A. Foster, C. Montes, C. A. Jaramillo, Nathan A. Jud, D. S. Jones, and B. J. MacFadden. 2016. First North American fossil monkey and early Miocene tropical biotic interchange. Nature 533:243–246.

Bond, M., M. F. Tejedor, K. E. Campbell Jr., L. Chornogubsky, N. Novo, and F. Goin. 2015. Eocene primates of South America and the African origins of New World monkeys. Nature 520:538–541.

Brace, S., J. A. Thomas, L. Dalén, J. Burger, R. D. E. MacPhee, I. Barnes, and S. Turvey. 2016. Evolutionary history of the Nesophontidae, the last unplaced recent mammal family. Molecular Biology and Evolution 33:3095–3103.

Herrera, F., S. R. Manchester, J. Vélez-Juarbe, and C. Jaramillo. 2014. Phytogeographic history of the Humiriaceae (Part 2). International Journal of Platn Science 175:828–840.

Iturralde-Vinent, M. A., and R. D. E. MacPhee. 1999. Paleogeography of the Caribbean region: implications for Cenozoic biogeography. Bulletin of the American Museum of Natural History 238:1–95.

Marivaux, L., J. Vélez-Juarbe, and P.-O. Antoine. 2021. 3D models related to the publication: An unpredicted ancient colonization of the West Indies by Nort American rodents: dental evidence of a geomorph from the early Oligocene of Puerto Rico. MorphoMuseuM. DOI: 10.18563/journal.m3.128

Marivaux, L., J. Vélez-Juarbe, G. Merzeraud, F. Pujos, L. W. Viñola López, M. Boivin, H. Santos-Mercado, E. J. Cruz, A. Grajales, J. Padilla, K. I. Vélez-Rosado, M. Philippon, J.-L. Léticée, P. Münch, and P.-O. Antoine. 2020. Early Oligocene chinchilloid caviomorphs from Puerto Rico and the initial rodent colonization of the West Indies. Proceedings of the Royal Society B 287:20192806.

Marivaux, L., J. Vélez-Juarbe, L. W. Viñola López, P.-H. Fabre, F. Pujos, H. Santos-Mercado, E. J. Cruz, A. M. Grajales Pérez, J. Padilla, K. I. Vélez-Rosado, J.-J. Cornée, M. Philippon, P. Münch and P. Olivier Antoine. 2021. An unpredicted ancient colonization of the West Indies by North American rodents: dental evidence of a geomorph from the early Oligocene of Puerto Rico. Papers in Palaeontology, 1–19. DOI: 10.1002/spp2.1388

Ortega-Ariza, D., E. K. Franseen, H. Santos-Mercado, W. R. Ramírez-Martínez, and E. E. Core-Suárez. 2015. Strontium isotope stratigraphy for Oligocene-Miocene carbonate systems in Puerto Rico and the Dominican Republic: implications for Caribbean processes affecting depositional history. Journal of Geology 123:539–560.

Poinar, G., Jr., and D. B. Wake. 2015. Palaeoplethodon hispaniolae gen. n., sp. n. (Amphibia: Caudata), a fossil salamander from the Caribbean. Palaeodiversity 8:21–29.

Robinson, E. 1994. Jamaica. 111–127. In Donovan, S. K. and Jackson, T. A. (eds.) Caribbean Geology: An Introduction. University of West Indies Publishers Association, Kingston.

Roca, A. L., G. K. Bar-Gal, E. Eizirik, K. M. Helgen, R. Maria, M. S. Springer, S. J. O'Brien, and W. J. Murphy. 2004. Mesozoic origin for West Indian insectivores. Nature 429:649–651.

Sato, J. J., S. D. Ohdachi, L. M. Echenique-Diaz, R. Borroto-Páez, G. Begué-Díez, J. L. Delgado-Labañino, J. Gámez-Díez, J. Alvarez-Lemus, S. Truong Nguyen, N. Yamaguchi, and M. Kita. 2016. Molecular phylogenetic analysis of nuclear genes suggest a Cenozoic over-water dispersal origin for the Cuban solenodon. Scientific Reports 6:31173.

Velez-Juarbe, J., and D. P. Domning. 2014. Fossil Sirenia of the West Atlantic and Caribbean Region: X. Priscosiren atlantica, gen. et sp. nov. Journal of Vertebrate Paleontology 34:951–964.

Velez-Juarbe, J., C. A. Brochu, and H. Santos. 2007. A gharial from the Oligocene of Puerto Rico: transoceanic dispersal in the history of a non-marine reptile. Proceedings of the Royal Society B 274:1245–1254.

Velez-Juarbe, J., T. Martin, R. D. E. MacPhee, and D. Ortega-Ariza. 2014. The earliest Caribbean rodents: Oligocene caviomorphs from Puerto Rico. Journal of Vertebrate Paleontology 34:157–163.

Wednesday, April 7, 2021

Origen e Historia Evolutiva de los Manatíes, Parte 2

Hoy les traigo el descubrimiento más reciente sobre la historia evolutiva de los manatíes. Y es que en esta nueva publicación científica junto con los colegas Catalina Suarez, Javier N. Gelfo y Jorge W. Moreno-Bernal, describimos los restos más antiguos de manatíes de las Américas. En la entrada previa de esta serie ya les había adelantado lo que sabíamos hasta el momento (2015) sobre la historia evolutiva de los manatíes, incluyendo el origen europeo del grupo. En este nuevo trabajo describimos una porción de un maxilar izquierdo con las dos muelas más posteriores (denominadas como M2 y M3), proveniente de la Formación Barzalosa, la cual se depositó entre 16.5-17.7 millones de años, lo cual nos ayuda a entender mejor los orígenes de las especies actuales de manatí (Suarez et al., 2021). Al estudiar y examinar el fósil de la Formación Barzalosa llegamos a la conclusión que guarda mucha similitud con Potamosiren magdalenensis, una especie de manatí extinto que vivía en lo que hoy día es Colombia entre 11.6-13.8 millones de años atrás (Reinhart, 1951; Kellogg, 1966; Domning, 1997). Por su parecido, designamos a este nuevo fósil como Potamosiren cf. P. magdalenensis, y pasa a ser el registro más antiguo de esta especie. Algo que distingue a Potamosiren de otros sirenios, especialmente de otros manatíes, son dos características particulares de sus dientes. La primera es que todavía retienen tres molares por cada cuadrante y la segunda, es que el esmalte de las muelas es inusualmente grueso.

A-C. Maxilar izquierdo de Potamosiren cf. P. magdalenensis de la Formación Barzalosa. 
D. Maxilar izquierdo de Potamosiren magdalenensis del Grupo Honda. (Modificado de Suarez et al., 2021).

El Potamosiren de la Fm. Barzalosa, junto a una especie poco conocida de manatí del Mioceno temprano de Perú (Antoine et al., 2016), representan los restos más antiguos de manatíes en las Américas. Ambos, coinciden geográficamente y temporalmente con el inicio de la formación del Mega-Humedal de Pebas, el cual abarcó una enorme zona entre 23-10 millones de años, e incluía partes de Perú, Colombia y Brazil (Hoorn et al., 2010). Este mega-humedal estaba conectado con el mar Caribe hacia el norte, lo cual funcionó como vía de entrada para distintos organismos marinos. Los depósitos sedimentarios que se formaron durante la duración de el Mega-Humedal de Pebas están principalmente compuestos de estratos que representan ambientes terrestres y de agua dulce, con algunas incursiones marinas. Mientras que el manatí de Pebas viene de sedimentos que representan ambientes acuáticos mixtos, los del Potamosiren de Barzalosa son de agua dulce, ambos entonces representan los primeros registros de sirenios del grupo terminal (crown group) fuera de ecosistemas marinos. (En este contexto, Sirenia es el crown group, que es el grupo más exclusivo compuesto de las especies actuales y sus parientes más cercanos, y Pan-Sirenia es el grupo total que incluye las especies extintas basales y las actuales; ver imagen abajo).

En este árbol filogenético se puede apreciar las relaciones entre los distintos grupos de sirenios, con énfasis en los manatíes (Trichechidae). En gris está representado la duración del Mega-Humedal de Pebas y los distintos colores representan los ambientes donde se encuentran las distintas especies. (Modificado de Suarez et al., 2021).

Como se puede observar en el árbol (ver arriba) entre los sirenios, solamente los manatíes (Trichechinae) incursionan en ambientes de agua dulce. Esto contrasta con otros grupos de organismos marinos. Por ejemplo, los odontocetos han incursionado en ambientes de agua dulce en múltiples ocasiones y en diversas partes del mundo (Fordyce, 1983; Cassens et al., 2000; Hulbert & Whitmore, 2006; Geisler et al., 2011; Boessenecker & Poust, 2015; Bianucci et al., 2013; Pyenson et al., 2015; Boersma & Pyenson, 2016; Benites-Palomino et al., 2020). El Mega-Humedal de Pebas no fue la excepción ya que se han encontrado fósiles de iniidos y platanistidos en distintas localidades (Bianucci et al., 2013; Benites-Palomino et al., 2020).

América del Sur y Central alrededor de 12 millones de años atrás, mostrando las localidades donde se han encontrado iniidos y platanistidos en ambientes marinos (azul) y de agua dulce (amarillo). (Modificado de Benites-Palomino et al., 2020).

En adición a los mamíferos marinos, el Mega-Humedal de Pebas fue un lugar excepcional para que distintos grupos de organismos de origen marino incursionaran y se adaptaran a ambientes de agua dulce y pantanosos, como por ejemplo las mantarrayas de agua dulce (Fontenelle et al., 2021) y algunos otros grupos de peces (Bloom & Lovejoy, 2017). Incluso algunos grupos se diversificaron para ocupar distintos espacios ecológicos y proliferaron durante la duración de este mega-humedal (Salas-Gismondi et al., 2015). No es la primera vez que se propone que la formación del Mega-Humedal de Pebas haya sido clave para la incursión de manatíes en cuerpos de agua dulce. Esta hipótesis se propuso por primera vez en los 1980's (Domning, 1982) y más recientemente en un estudio genético de las especies actuales (Silva de Zouza et al., 2021). El Potamosiren de Barzalosa es evidencia fósil que le da aún más veracidad a esta hipótesis (Suarez et al., 2021).


Las muelas de Potamosiren
Diferentes grupos de mamíferos herbívoros han evolucionado distintas adaptaciones como resultado de tener una dieta que incluye vegetación abrasiva o fibrosa. Por ejemplo, los caballos tienen dientes hipsodontes (dientes con coronas muy altas) que los hacen más resistentes o duraderos al desgaste. Otra posible alternativa para contrarrestar el desgaste es que el esmalte del diente sea más grueso de lo usual, haciéndolo más resistente. Mientras que una tercera estrategia es tener dientes que pueden ser reemplazados a medida que se van gastando.
Como mencione previamente, el esmalte inusualmente grueso de las muelas de Potamosiren es único entre los sirenios. Sin embargo, no es la primera vez que se observa este fenómeno en mamíferos marinos herbívoros. Y es que el esmalte engrosado nos recuerda a las muelas de Desmostylus, un mamífero marino herbívoro que habitaba a lo largo de las costas del Pacífico Norte hasta hace unos 10-12 millones de años. Desmostylus pertenece a un grupo completamente extinto llamado Desmostylia, y sus cráneos y esqueletos son tan particulares que todavía queda mucho por descifrar sobre su paleoecología e incluso sobre su postura en tierra y su relación con otras especies. Sin embargo, gracias a estudios isotópicos usando los dientes de Desmostylus conocemos un poco sobre su dieta (Clementz et al., 2003). Los resultados de ese estudio sugieren que los Desmostylus consumían distintos tipos de vegetación acuática, algunas, como los pastos marinos, cuales inevitablemente debía incluir interacción con el substrato e ingestión accidental de sedimento; en fin, una dieta relativamente variada y muy parecida a la del manatí de Florida (Trichechus manatus latirostris), los cuales tienen una dentadura muy particular como veremos más adelante. Como nota al calce, hay que mencionar que la dieta de los manatíes actuales es una excepción, ya que los sirenios han sido casi exclusivamente consumidores de pastos marinos durante la mayor parte de su historia evolutiva (Clementz, et al., 2003; MacFadden et al., 2004; Clementz & Sewall, 2011), y su morfología dental ha sido generalmente muy conservadora. Así que cuando observamos cualquier cambio significativo en la dentadura de una especie de sirenio inmediatamente despierta la curiosidad por conocer mejor sus hábitos alimenticios.

Parte de la mandíbula de un Desmostylus, incluyendo el cuarto premolar y las primeras dos muelas. Las muelas están compuestas de cúspides modificadas en columnas con esmalte muy grueso.

Los distintos ecosistemas que formaban parte del Mega-Humedal de Pebas permitieron que los manatíes tuviesen acceso a una cantidad mayor de vegetación, en adición a un incremento en la interacción con vegetación acuática cerca del substrato e ingestión accidental de sedimento. Esto claramente debió resultar en un cambio significativo en la dieta de estos sirenios (Domning, 1982; Beatty et al., 2012), que como antes mencionado, eran principalmente consumidores de pastos marinos. Tomando esto en consideración, en nuestro trabajo proponemos que el esmalte engrosado de las muelas de Potamosiren es una adaptación a una dieta más variada, incluyendo mayor cantidad de vegetación abrasiva y fibrosa. Y como verán, las especies de manatí que vinieron después de Potamosiren se adaptaron a esta dieta de una forma aún más particular.

Molares superiores (izquierda) y mandíbula (derecha) de Potamosiren magdalenensis. Aquí se puede apreciar la presencia de solamente tres molares por cuadrante.

Posterior a la extinción de Potamosiren aparece otra especie de manatí conocido como Ribodon limbatus el cual también se encuentra en depósitos de agua dulce del Mioceno tardío al Plioceno. Ribodon se diferencia de Potamosiren al tener más de tres molares por cuadrante (usualmente entre 4-5), los cuales son muy similares entre sí y son relativamente pequeños, tampoco tienen esmalte engrosado. Ribodon también se caracteriza porque sus muelas eran reemplazadas gradualmente. En otras palabras, a lo largo de la vida de un individuo las muelas se movían lentamente hacia al frente mientras que en la parte posterior iban saliendo muelas nuevas, una y otra vez! Este tipo de reemplazo horizontal de los dientes es una adaptación que se observa por primera vez en Ribodon y que todavía observamos en las tres especies de manatí actuales.

Detalles de la dentición de Ribodon (arriba) y Trichechus (abajo). Noten la presencia de multiples muelas, de similar morfología y tamaño, al igual que los dientes nuevos hacia la parte posterior de la fila dental.

Aún con esta nueva información, queda mucho por conocer sobre la historia evolutiva de los manatíes. Por ejemplo, todavía no conocemos bien la identidad del manatí de Pebas y tampoco conocemos bien la morfología craneal de Potamosiren y Ribodon. Similarmente, faltan estudios isotópicos que nos puedan dar una mejor idea de la dieta de estas especies de manatíes ancestrales. Esperemos que tengamos contestaciones a estas incógnitas en un futuro no tan lejano.

Los manatíes actuales pertenecen al género Trichechus, e incluyen tres especies - T. manatus (manatí antillano), T. inunguis (manatí amazónico) y T. senegalensis (manatí africano). En adición a estas tres especies, se conoce una subespecie extinta del manatí antillano del Pleistoceno de Norteamérica (T. manatus bakerorum) y una especie del Pleistoceno amazónico (T. hesperamazonicus) (Domning, 2005; Perini et al., 2020). Todas las especies de Trichechus (actuales y extintas) reemplazan sus muelas horizontalmente, y estas son aún más pequeñas que las de Ribodon, teniendo en algunos casos hasta siete muelas por cuadrante! Esto resulta en un sistema relativamente eficiente donde se reemplazan los dientes continuamente para contrarrestar una dieta variada que puede incluir vegetación fibrosa e ingestión accidental de sedimento. Sin embargo, no es perfecto, y la composición y tipo de sedimento también juega un papel importante. En lugares como el estado de Florida donde la arena tienen una mayor composición de cuarzo, el desgaste en los dientes de los manatíes es mayor que el observado en los que viven en el Caribe, donde las arenas están principalmente compuestas de carbonato de calcio (Domning & Hayek, 1984).

Literatura

Antoine, P.-O., M. A. Abello, S. Adnet, A. J. Altamirano Sierra, P. Baby, G. Billet, M. Boivin, Y. Calderón, A. Candela, J. Chabain, F. Corfu, D. A. Croft, M. Ganerod, C. Jaramillo, S. Klaus, L. Marivaux, R. E. Bavarrete, M. J. Orliac, F. Parra, M. E. Pérez, F. Pujos, J. C. Rage, A. Ravel, C. Robinet, M. Roddaz, J. V. Tejada-Lara, J. Velez-Juarbe, F. P. Wesselingh, and R. Salas-Gismondi. 2016. A 60-million-year Cenozoic history of western Amazonian ecosystems in Contamana, eastern Peru. Gondwana Research 31:30–59.

Beatty, B. L., T. Vitkovski, O. Lamnert, and T. E. Macrini. 2012. Osteological associations with unique tooth development in manatees (Trichechidae, Sirenia): a detailed look at modern Trichechus and a review of the fossil record. Anatomical Record 295:1504–1512.

Benites-Palomino, A., G. Aguirre-Fernandez, J. W. Moreno-Bernal, A. Vanegas, and C. Jaramillo. 2020. Miocene freshwater dolphins from La Venta, Huila, Colombia suggest independent invasions of riverine environments in tropical South America. Journal of Vertebrate Paleontology 40:e1812078.

Bianucci, G., O. Lambert, R. Salas-Gismondi, J. Tejada, F. Pujos, M. Urbina, and P.-O. Antoine. 2013. A Miocene relative of the Ganges river dolphin (Odontoceti, Platanistidae) from the Amazonian basin. Journal of Vertebrate Paleontology 33:741–745.

Bloom, D. D., and N. R. Lovejoy. 2017. On the origins of marine-derived freshwater fishes in South America. Journal of Biogeography 44:1927–1938.

Boersma, A. T., and N. D. Pyenson. 2016. Arktocara yakataga, a new fossil odontocete (Mammalia, Cetacea) from the Oligocene of Alaska and the antiquity of Platanistoidea. PeerJ 4:e2321.

Boessenecker, R. W., and A. W. Poust. 2015. Freshwater occurrence of the extinct dolphin Parapontoporia (Cetacea: Lipotidae) from the upper Pliocene nonmarine Tulare Formation of California. Palaeontology 58:489–496.

Cassens, I., S. Vicario, V. G. Waddell, H. Balchowsky, D. Van Belle, W. Ding, C. Fan, R. S. Lal Mohan, P. C. Simoes-Lopes, R. Bastida, A. Meyer, M. J. Stanhope, and M. C. Milinkovitch. 2000. Independent adaptation to riverine habitats that allowed survival of ancient cetacean lineages. Proceeding of the National Academy of Sciences U.S.A. 97:11343–11347.

Clementz, M. T., and J. O. Sewall. 2011. Latitudinal gradients in greenhouse seawater d18O: evidence from Eocene sirenian tooth enamel. Science 332:455–458.

Clementz, M. T., K. A. Hoppe, and P. L. Koch. 2003. A paleoecological paradox: the habitat and dietary preferences of the extinct tethythere Desmostylus inferred from stable isotope analysis. Paleobiology 29:506–519.

Domning, D. P. 1982. Evolution of manatees: a speculative history. Journal of Paleontology 56:599–619.

Domning, D. P. 1997. Sirenia. In: R. F. Kay, R. H. Madden, R. L. Cifelli, and J. J. Flynn (Eds.), Vertebrate Paleontology in the Neotropics: the Miocene Fauna of La Venta, Colombia. Smithsonian Institution Press, Washington and London, pp. 383–391.

Domning, D. P., and L.-A. C. Hayek. 1984. Horizontal tooth replacement in the Amazonian manatee (Trichechus inunguis). Mammalia 48:105–127.

Fontenelle, J. P., F. P. Luna Marques, M. A. Kolmann, and N. R. Lovejoy. 2021. Biogeography of the neotropical freshwater stingrays (Myliiobatiformes: Potamotrygoninae) reveals effects of continent-scale paleogeographic change and drainage evolution. Journal of Biogeography 00:1–14.

Fordyce, R. E. 1983. Rhabdosteid dolphins (Mammalia: Cetacea) from the middle Miocene, lake Frome area, South Australia. Alcheringa 7:27–40.

Geisler, J. H., M. R. McGowen, G. Yang, and J. Gatesy. 2011. A supermatrix analysis of genomic, morphological, and paleontological data from crown Cetacea. BMC Evolutionary Biology 11:1–33.

Hoorn, C., F. P. Wesselingh, H. T. Steege, M. A. Bermudez, A. Mora, J. Sevink, I. Sanmartín, A. Sanchez-Meseguer, C. L. Anderson, J. P. Figuerido, C. Jaramillo, D. Riff, F. R. Negri, H. Hooghiemstra, J. Lundberg, T. Stadler, T. Särkinen, and A. Antonelli. 2010. Amazonia through time: Andean uplift, climate change, landscape evolution, and biodiversity. Science 330:927–931.

Hulbert, R. C., and F. C. Whitmore. 2006. Late Miocene mammals from the Mauvilla local fauna, Alabama. Bulletin of the Florida Museum of Natural History. 46:1–28.

Kellogg, R. 1966. Fossil marine mammals from the Miocene Calvert Formation of Maryland and vVirginia, parts 3 and 4. Bulletin of the U. S. National Museum 247:65–101.

MacFadden, B. J., P. Higgins, M. T. Clementz, and D. S. Jones. 2004. Diets, habitat preferences, and niche differentiation of Cenozoic sirenians from Florida: evidence from stable isotopes. Paleobiology 30:297–324.

Pyenson, N. D, J. Velez-Juarbe, C. S. Gutstein, H. Little, D. Vigil, and A. O'Dea. 2015. Isthminia panamensis, a new fossil inioid (Mammalia, Cetacea) from the Chagres Formation of Panama and the evolution of 'river dolphins' in the Americas. PeerJ 2015: e1227. 

Reinhart, R. H. 1951. A new genus of sea cow from the Miocene of Colombia. Bulletin of the Department of Geological Sciences 28:203–214.

Salas-Gismondi, R., J. J. Flynn, P. Baby, J. V. Tejada-Lara, F. P. Wesselingh, and P.-O. Antoine. 2015. A Miocene hyperdiverse crocodylian community reveals peculiar trophic dynamics in proto-Amazonian mega-wetlands. Proceedings of the Royal Society B 282:20142490.

Silva de Souza, E. M., L. Freitas, E. K. da Silva Ramos, G. Selleghin-Veiga, M. C. Rachid-Ribeiro, F. A. Silva, M. Marmontel, F. Rodrigues dos Santos, A. Laudisoit, E. Verheyen, D. P. Domning, and M. Freitas Nery. 2021. The evolutionary history of manatees told by their mitogenomes. Scientific Reports 11:3564.

Suarez, C., J. N. Gelfo, J. W. Moreno-Bernal and J. Velez-Juarbe. 2021. An early Miocene manatee from Colombia and the initial Sirenian invasion of freshwater ecosystems. Journal of South American Earth Sciences 109:103277