Showing posts with label Cetaceans. Show all posts

Tuesday, January 18, 2022

El Primer Gigante de los Mares: Cymbospondylus youngorum

Cuando pensamos en gigantes marinos, usualmente lo primero que nos viene a la mente son la ballenas, las cuales incluyen el animal más grande de nuestro planeta, la ballena azul (Balaenoptera musculus), que puede alcanzar hasta un largo de 29 metros (95 pies). Durante el Mesozoic, la llamada 'Era de los Dinosaurios' los océanos también tenían gigantes marinos, principalmente ictiosaurios, pliosaurios y mosasaurios. De estos tres grupos de reptiles marinos del Mesozoico, los ictiosaurios se llevan el record por alcanzar los tamaños más grandes. En mi colaboración más reciente, publicada a finales de diciembre en Science, describimos el primer ictiosaurio gigante, quien a la vez es el primer animal que se puede considerar gigante en toda la historia de vida en el planeta. La nueva especie, llamada Cymbospondylus youngorum, fue descubierta en depósitos del Triásico Medio (~242–247 millones de años) en el centro de Nevada y es parte de una fauna, conocida como Fossil Hill Fauna, que incluye siete especies adicionales de ictiosaurios y el pistorauroideo Augustasaurus hagdorni (Leidy, 1868; Merriam, 1906, 1910; Sander et al., 1997; Schmitz et al., 2004; Fröbisch et al., 2006; Fröbisch et al., 2013; Klein et al., 2020; Sander et al., 2021).
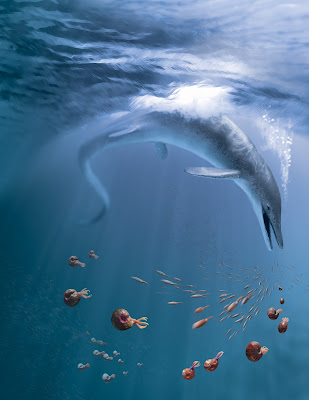
Reconstrucción de Cymbospondylus youngorum hecha por mi talentosa colega Stephanie Abramowicz (aquí pueden ver algunos de sus otros trabajo).

Con un cráneo de alrededor dos metros de largo, estimamos que el cuerpo de Cymbospondylus youngorum alcanzaba un largo de alrededor de 17 metros, lo cual es cerca al tamaño de los cachalote (Physeter macrocephalus), y unos cuantos metros más pequeño que el icitiosaurio nombrado más grande, Shonisaurus sikanniensis, que se estima medía alrededor de 21 metros (Nicholls and Manabe, 2004; Sander et al., 2021). En adición a S. sikanniensis, se han encontrado restos de otros ictiosaurios más grandes, con tamaños que se acercan a los 25 metros (Lomax et al., 2018), pero tanto estos, como S. sikanniensis, son del Triásico tardío, o sea, geocronológicamente más jóvenes que C. youngorum.
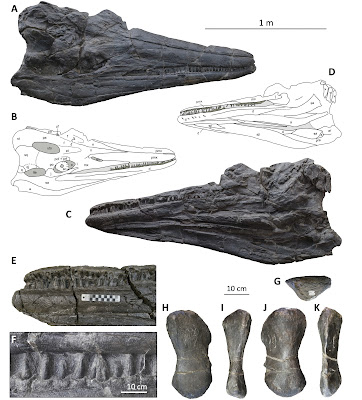
El holotipo de Cymbospondulus youngorum: vistas dorsal (A-B) y ventral (C-D) del cráneo y mandíbula; detalle de la dentadura (E-F), y húmero (H-K). El cráneo se encuentra actualmente en exhibición en el Museo de Historia Natural del Condado de Los Angeles.

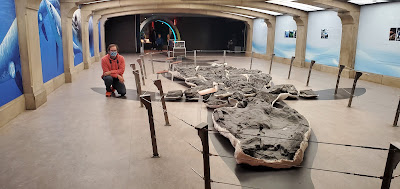
El holotipo de Shonisaurus sikanniensis, el cual tuve la oportunidad de ver en una visita reciente al Royal Tyrrell Museum en Alberta, Canada.

La Fauna de Fossil Hill representa el conjunto más diverso de ictiosarios que se conoce al momento, con especies que van desde los dos a 17 metros de largo. Esto tomó lugar alrededor de 246 millones de años atrás, apenas unos seis millones después de la extinción Permo-Triásica, (la peor de la historia y donde se extinguió alrededor de 90% de las especies en el planeta) e, interesantemente, unos tres millones de años desde que aparecen los primeros ictiosaurios . Todo esto sugiere una pronta recuperación en los océanos y que los icitiosaurios se diversificaron y alcanzaron tamaños enormes rápidamente. Con esta información en mano, decidimos explorar en mayor detalle la estructura e interacciones tróficas (quién se come a quién) en este antiguo ecosistema y tazas evolutivas en los ictiosaurios.

Además de los reptiles marinos, la Fauna de Fossil Hill incluye peces, conodontes, ammonites y posiblemente coleoideos (cefalópodos sin concha). Una de las preguntas principales que nos hicimos sobre este ecosistema antiguo fue cuan estable era este ecosistema dominado por depredadores (i.e. los ictiosaurios) aún cuando todavía no existían los productores primarios que encontramos actualmente en los océanos. Para contestar esta pregunta estimamos la masa corporal, número de individuos y requerimientos energéticos de las especies de la Fauna de Fossil Hill y usamos esa información para explorar distintos modelos computacionales de flujo de energía para determinar la estabilidad de esa red trófica. 
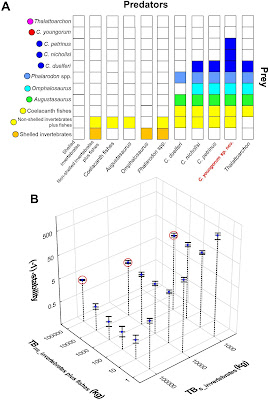
Arriba, matriz de interacciones tróficas (quién se come a quién) que utilizamos para establecer los modelos de flujo de energía entre los miembros de la Fauna de Fossil Hill.
Abajo, gráfica con los valores obtenidos con los distintos modelos de red trófica que usamos. Los distintos resultados son en base a los valores que estimamos para el total de la biomasa para peces e invertebrados con partes duras. 

Los resultados de este análisis confirmaron que el ecosistema de la Fauna de Fossil Hill si era estable, aún si solo consideramos a los amonites como los principales productores primarios y que la cadena alimenticia era más corta en comparación a las actuales. Otro aspecto interesante de esta parte de nuestro estudio es que los resultados sugieren que había comida suficiente para la presencia (hipotética) de una especie adicional de ictiosaurio gigante que consumiera alimento a granel (bulk feeding/filter feeding), como hacen los misticetos (ballenas barbadas).

El otro análisis que hicimos fue comparar las tazas de evolución de gigantismo entre ictiosaurios y cetáceos. Para esto hicimos unos análisis utilizando filogenias calibradas y estimados de tamaño de cuerpo para la mayor cantidad de especies posible de ambos grupos, que en el caso de los ictiosaurios logramos incluir 48 especies y 269 especies de cetáceos. El resultado principal de este análisis fue concluir que los ictiosaurios alcanzaron tamaños gigantes bien temprano y bien rápido en su historia evolutiva! El tiempo transcurrido desde su origen al momento que alcanzaron tamaños gigantes fue mucho más corto que en los cetáceos, que como sabemos, también alcanzaron tamaños gigantes, pero a lo largo de un periodo más largo de tiempo. En ambos grupos se detectaron aumentos en el tamaño de cuerpo en más de una ocasión, y en algunos grupos de cetáceos también observamos disminución en tamaño, particularmente en los Kogiidae (los cachalotes pigmeos y parientes extintos). 
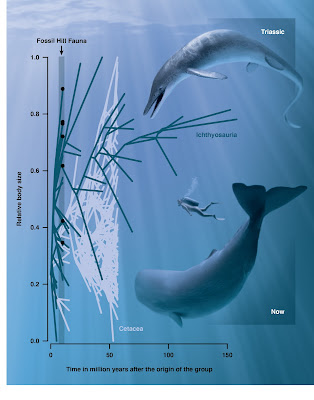
Gráfica comparando la taza de evolución de tamaño de cuerpo entre ictiosaurios (líneas azules) y cetáceos (líneas blancas). El eje 'Y' representa los valores de tamaño de cuerpo (aumentan hacia arriba), mientras que el eje 'X' es el tiempo transcurrido (en millones de años) desde el origen de los grupos. Aquí también se puede ver la similitud en tamaño entre Cymbospondylus youngorum (arriba a la derecha) y un cachalote (abajo a la derecha).

Previamente se habían publicado trabajos enfocados en la evolución de gigantismo en los misticetos (ballenas barbadas) y nuestros resultados son congruentes con los de ese estudio (Slater et al., 2017). Sin embargo, nuestro trabajo es el primero en examinar la evolución de tamaño de cuerpo que incluye todos los grupos de cetáceos, desde los más antiguos hasta los actuales. Nuestros resultados sugieren además que la evolución de gigantismo en los cetáceos está relacionado con cambios en la alimentación. En el caso de los misticetos parece relacionarse con la pérdida de dientes y alimentación a granel (bulk feeding), mientras que en los odontocetos con alimentación raptorial y búsqueda de presas a grandes profundidades.

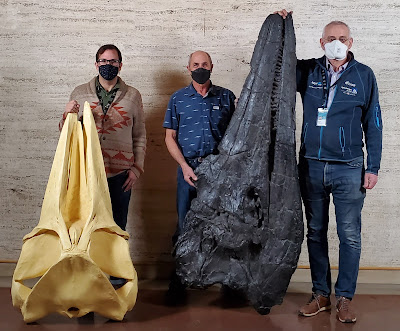
De izquierda a derecha: yo con una réplica del cráneo de un rorcual Minke (Balaenoptera acutorostrata), al centro Tom Young quien junto con su esposa son los fundadores de Great Basin Brewing Co. y a la derecha Martin Sander (University of Bonn), uno de los autores principales del trabajo, con una réplica del cráneo de Cymbospondylus youngorum. El epíteto específico "youngorum" es en honor a los Young por su apoyo a los proyecto de Martin en Nevada y a nuestro museo.

Como investigadores frecuentemente nos gusta comparar ictiosaurios con cetáceos, así que este proyecto fue muy satisfactorio ya que logramos investigar y comparar detalladamente algunos de los aspectos evolutivos que comparten ambos grupos. Para este proyecto utilizamos una combinación de métodos paleontológicos tradicionales (descripciones, medidas y observaciones, etc.) y modelos computacionales lo cual facilitó la exploración de patrones macroevolutivos usando el registro fósil de estos tetrápodos marinos. Nuestros resultados, como ya mencioné, fueron muy interesantes y no hubiese sido posible sin el diverso equipo de expertos en nuestro grupo de trabajo. Aún así, este fue un primer paso ya que queda mucho más por conocer de estos antiguos ecosistemas marinos y evolución de tamaño de cuerpo en otros grupos de vertebrados que se readaptaron a una vida en el mar.

Referencias

Fröbisch, N. B., P. M. Sander, and O. Rieppel. 2006. A new species of Cymbospondylus (Diapsida, Ichthyosauria) from the Middle Triassic of Nevada and a re-evaluation of the skull osteology of the genus. Zoological Journal of the Linnean Society 147:515–538.

Fröbisch, N. B., J. Fröbisch, P. M. Sander, L. Schmitz, and O. Rieppel. 2013. Macropredatory ichthyosaur from the Middle Triassic and the origin of modern trophic networks. Proceedings of the National Academy of Sciences 110(4):1393–1397.

Klein, N., L. Schmitz, T. Wintrich, and P. M. Sander. 2020. A new cymbospondylid ichthyosaur (Ichthyosauria) from the Middle Triassic (Anisian) of the Augusta Mountains, Nevada, USA. Journal of Systematic Palaeontology 18(14):1167–1191.

Leidy, J. 1868. Notice of some reptilian remains from Nevada. Proceedings of the Philadelphia Academy of Sciences 20:177–178.

Lomax, D. R., P. De la Salle, J. A. Massare, and R. Gallois. 2018. A giant late Triassic ichthyosaur from the UK and a reinterpretation of the Aust Cliff 'dinosaurian' bones. PLoS ONE 13(4):e0194742.

Merriam, J. C. 1906. Preliminary note on a new marine reptile from the Middle Triassic of Nevada. University of California Publications–Bulletin of the Department of Geology 5:5–79.

Merriam, J. C. 1910. The skull and dentition of a primitive ichthyosaurian from the Middle Triassic. University of California Publications–Bulletin of the Department of Geology 5:381–390.

Nicholls, E. L., and M. Manabe. 2004. Giant ichthyosaurs of the Triassic—a new species of Shonisaurus from the Pardonet Formation (Norian:late Triassic) of British Columbia. Journal of Vertebrate Paleontology 24:838–849.

Sander, P. M., O. C. Rieppel, and H. Bucher. 1997. A new pistosaurid (Reptilia:Sauropterygia) from the Middle Triassic of Nevada and its implications for the origin of the plesiosaurs. Journal of Vertebrate Paleontology 17(3):526–533.

Sander, P. M., E. M. Griebeler, N. Klein, J. Velez-Juarbe, T. Wintrich, L. J. Revell, and L. Schmitz. 2021. Early giant reveals faster evolution of large size in ichthyosaurs than in cetaceans. Science 374:eabf5787.

Schmitz, L., P. M. Sander, G. W. Storrs, and O. Rieppel. 2004. New Mixosauridae (Ichthyosauria) from the Middle Triassic of the Augusta Mountains (Nevada, USA) and their implications for mixosaur taxonomy. Palaeontographica Abt. A 270:133–162.

Slater, G. J., J. A. Goldbogen, and N. D. Pyenson. 2017. Independent evolution of baleen whale gigantism linked to Plio-Pleistocene ocean dynamics. Proceedings of the Royal Society B 284:20170546.

Tuesday, February 25, 2014

¡Muerte Súbita en el Océano!

Hoy sale publicado en la revista científica Proceedings of the Royal Society B el trabajo titulado Repeated mass strandings of Miocene marine mammals from Atacama Region of Chile point to sudden death at sea (lo pueden bajar GRATIS). El mismo, es el resultado de un proyecto colaborativo entre investigadores nacionales e internacionales y donde se combina el uso de herramientas tradicionales de la paleontología con equipos y técnicas innovadoras para obtener datos tales como digitalización 3D y fotogrametría. En este trabajo tomamos un enfoque multidisciplinario para descubrir que le ocurrió a un grupo de vertebrados marinos que murieron al mismo tiempo y posteriormente fueron depositados y preservados en lo que fuese una planicie de marea en la costa del norte de Chile a finales del periodo Mioceno (entre 6-9 millones de años atrás). La localidad donde se hizo el estudio se le conoce como Cerro Ballena, la cual está localizada en la Región de Atacama (cerca del desierto más seco del mundo), y al norte del pueblo de Caldera (lugar que inspiró al autor de Condorito y donde se venden las mejores empanadas que he comido).
Vista desde el extremo sur de Cerro Ballena, desde aquí se puede observar el pueblo de Caldera y océano Pacífico. La Carretera que se ve es parte de la Autopista Panamericana.
Gracias a las fuerzas tectónicas que a través del tiempo han cambiado la costa occidental de América del Sur, Cerro Ballena se encuentra hoy día alejado de la costa y sobre el nivel del mar. Si "Cerro Ballena, Chile y cetáceos fósiles" les suena familiar en este blog, es porque hace casi dos años atrás fui parte de una expedición científica donde recolectamos datos para este trabajo (visiten las entradas anteriores sobre ese viaje aquí, aquí, aquí, aquí, y aquí).

El Descubrimiento
Previo a nuestro trabajo, ya se conocía sobre la existencia de fósiles en Cerro Ballena, por ende el nombre. Sin embargo, los fósiles que se encontraban allí no estaban completamente expuestos, por lo cual colectarlos para estudiarlos hubiera sido muy laborioso y costoso. Afortunadamente, durante los trabajos de ensanchamiento de la Autopista Panamericana, la cual pasa por la localidad, muchos de estos fósiles quedaron expuestos y se notó que estos sólo se encontraban en ciertas capas sedimentarias, todas pertenecientes a una formación geológica llamada Formación Bahía Inglesa. Al ser tan grande la cantidad de fósiles que quedaron expuestos tuvieron que detener el trabajo de ensanchamiento de la autopista para rescatar los mismos. Estos esfuerzos fueron liderados por un equipo de paleontólogos del Museo Paleontológico de Caldera, el Museo Nacional de Historia Natural de Chile y la Universidad de Chile, los cuales se encargaron de mapear la posición de cada fósil en su respectivo horizonte. Más tarde se unieron a ese esfuerzo los integrantes de la oficina de digitación 3D del Smithsonian quienes hicieron scans de los fósiles in situ para poder salvaguardar esa información ya que pasará mucho tiempo para que algunos de estos sean preparados y estudiados en detalle.

Algunas de las ballenas siendo preparadas para ser colectadas. Cada carpa negra indica la localización de una ballena. A la derecha Ana M. Valenzuela-Toro, una de las coautoras del trabajo junto al espécimen B33.
El equipo de digitación 3D del Smithsonian. Adam Metallo (izquierda) y Vincent Rossi (derecha) utilizan varias herramientas para escanear a la ballena B33. Gracias al scan se pueden hacer imágenes como la que utilicé arriba para el banner de este blog al igual que imprimir copias 3D del mismo.
Aquí las ballenas ya colectadas y guardadas en el Museo Paleontológico de Caldera. 
No es inusual encontrar fósiles de vertebrados marinos en esta parte del mundo, de hecho, más al norte en Perú se encuentra la Formación Pisco, la cual es similar en edad a la Formación Bahía Inglesa (ronda entre los 10-4 millones de edad) y es una de las formaciones geológicas más estudiadas y más conocidas por su diversidad de mamíferos marinos extintos. Sin embargo, Cerro Ballena es diferente a lo que se ha encontrado en la Pisco y estas diferencias son lo que hacen Cerro Ballena un lugar especial.

Miembros del Team Ballena tomando datos de los horizontes fosilíferos en Cerro Ballena.
El Misterio de Cerro Ballena
En Cerro Ballena logramos identificar cuatro horizontes fosilíferos. Cada horizonte contenía un conjunto de vertebrados marinos, siendo la atracción principal la presencia de esqueletos completos o casi completos de ballenas barbadas, algunas hasta de 8 metros (26 pies) de largo. Nuestras observaciones indicaban que lo que pasó en Cerro Ballena fueron varios eventos de varamiento masivo. Quizás ya hayan escuchado sobre varamiento masivos de mamíferos marinos, ya que es un fenómeno que generalmente capta la atención de lo medios noticiosos. De hecho, muchos de los los varamientos masivos que ocurren hoy día generalmente incluyen a los cetáceos dentados (odontocetos: delfines, marsopas, cachalotes, etc). Un causante principal de este tipo de varamiento resulta como efecto secundario del uso de sonar por las marinas de guerra. Sin embargo los eventos que ocurrieron en Cerro Ballena tomaron lugar millones de años atrás, cuando nuestros ancestros eran muy primitivos y ni siquiera habían salido de África, así que podemos descartar esa causa para lo que ocurrió allí. Lo peculiar de Cerro Ballena, es que junto con las ballenas barbadas también encontramos otros vertebrados marinos, incluyendo cachalotes, delfín-morsa, focas, perezosos acuáticos y marlines. Esta ocurrencia multi-taxonómica señala a algún otro tipo de mecanismo que afectó por igual a todos estos vertebrados marinos y causó su varamiento masivo. Afortunadamente (bueno, quizás no para los animales) varamientos masivos que incluyen distintos grupos de vertebrados marinos ocurren hoy día. Estudios detallados de este tipo de varamientos han determinado que los mismos ocurren por intoxicación causada por floración de algas nocivas (también conocidos como marea roja). Las mareas rojas son comunes en zonas de surgencia, y gracias a estudios previos, sabemos que la costas de Chile y Perú son zonas de surgencia desde hace millones de años. Esta peculiar localidad no solo nos permite una ventana al pasado y descubrir un ecosistema marino con organismos distintos a los que vemos hoy día, si no que también nos permitió descubrir que eventos de marea roja, muy similares a los que todavía observamos hoy día y que continúan afectando a los vertebrados marinos han estado ocurriendo durante millones de años. Incluso, podemos predecir que otros depósitos fosilíferos ricos en vertebrados marinos en zonas de turgencia, como por ejemplo la Formación Pisco en Perú, puede que hayan preservado eventos como los que descubrimos en Cerro Ballena.
Nuestro trabajo en Cerro Ballena aún no termina, todavía nos queda describir en detalle muchos de los organismos que vivieron, y murieron en la costa chilena hace millones de años atrás.

Para mayor información sobre nuestro proyecto visiten la página oficial de Cerro Ballena.

En la página de Smithsonian X 3D pueden ver parte los fósiles que fueron escaneados e incluso si tienes acceso a una impresora 3D, imprimir tu copia personal de los fósiles.

También visiten la página del Pyenson Lab donde encontrarán más fotos y entradas sobre las distintas expediciones a Chile.

Visiten también:
Not Exactly Rocket Science
Smithsonian Science
Smithsonian Magazine
Science Magazine
PhysOrg
BBC News
Washington Post

Referencia:

Pyenson, N. D., C. S. Gutstein, J. F. Parham, J. P. Le Roux, C. Carreño Chavarría, H. Little, A. Metallo, V. Rossi, A. M. Valenzuela-Toro, J. Velez-Juarbe, C. M. Santelli, D. Rubilar Rogers, M. A. Cozzuol, and M. E. Suárez. 2014. Repeated mass strandings of Miocene marine mammals from Atacama Region of Chile point to sudden death at sea. Proceedings of the Royal Society B [in press].

Sunday, July 18, 2010

Convergencia: el caso de Odobenocetops ó el delfín que parecía morsa

Convergencia; en biología y paleobiología, se utiliza este término para referirse a instancias donde dos (o más) organismos, de grupos no relacionados, poseen rasgos morfológicos similares los cuales sirven un mismo propósito. Estas similitudes se pueden clasificar como homólogas (aquellas que están compuestas por estructuras similares, como las alas de las aves y las de los murciélagos) o análogas (aquellas que han evolucionado de estructuras distintas, como las alas de las aves y las de una mariposa). Otro ejemplo de convergencia se ve en los mamíferos con dientes hipsodontes. Caballos, algunos roedores y los desmostilios* tienen (o tenían) dientes hipsodontes. Este tipo de diente tiene coronas muy altas, por ende tardan más en desgastarse; esta morfología se correlaciona con dietas abrasivas (como comer grama o comer en lugares donde hay mucho sedimento mezclado con el alimento). Si estos organismos no tuvieran este tipo de dientes sería contraproducente continuar con ese modo de alimentación ya que sus dientes se gastarían muy rápido. Así que la selección natural ha favorecido tener dientes hipsodontes en estos organismos que llevan una dieta que incluye material abrasivo.

*Información adicional sobre desmostilios, incluyendo reconstrucciones, aquí, aquí y aquí.

En organismos vivos es relativamente fácil determinar si estructuras parecidas son convergentes o no, ya que se pueden hacer observaciones directas sobre el comportamiento o función de la estructuras o morfología que se consideran convergentes. Sin embargo, con los fósiles es distinto ya que generalmente no podemos hacer observaciones directas sobre el comportamiento de un organismo extinto. Es por esto que nos toca entonces interpretar la funcionalidad de esas estructuras comparando con lo que conocemos de organismos vivos. A continuación les traigo un interesante ejemplo de convergencia entre un fósil y un organismo moderno

Odobenocetops

En el 1993, Christian de Muizon describió un fósil de delfínido (el grupo de ballenas que incluye a los delfines) que representa uno de los mejores ejemplos de convergencia que conozco. El fósil consistía en parte de un cráneo (ver la imágen abajo) colectado en el sur de Perú. Los sedimentos donde se encontró el fósil son parte de una secuencia de rocas sedimentarias conocida como la Formación Pisco, de edad Pliocénico Temprano (5.3-3.6 millones de años). El fósil no solo representaba una nueva especie, sino también un nuevo grupo de delfínidos al cual llamó Odobenocetopsidae.

El primer espécimen descrito lo llamaron Odobenocetops peruvianus Muizon, 1993 (ver imagen abajo). Los rasgos morfológicos más distintivos de esta especie consisten en tener el rostro corto (el área frente a los ojos), procesos alveolares de la premaxilla (los espacios para los dientes) agrandados y orientados hacia abajo; los procesos alveolares era donde tenían unos colmillos también agrandados. La premaxilla también tiene varios forámenes y áreas de inserción de músculos bien marcadas que indican la presencia de labios grandes y quizás hasta bigotes. Otras características del cráneo incluye tener las órbitas de los ojos posicionadas dorsalmente y un paladar profundo. Estas características que tanto distinguen a los odobenocetópsidos son reminiscentes a las morsas* más que a otros delfinoideos.

*Vean las imágenes de un cráneo de morsa y comparen.

Odobenocetops peruvianus, arriba, foto del cráneo en vista lateral (anterior hacia la derecha); abajo, ilustración del cráneo mostrando los diferentes huesos que lo componen y el área de la órbita (cículo azul), modificada de Muizon (1993). Abreviaciones: Al = aliesfenoide; Bo = basioccipital; Fr = frontal; Mx = maxila; Na = nasal; Oc = occipital; Or = órbita; Pa = parietal; Pal = palatino; Pmx = premaxila; Ppo = proceso postorbital; Ppr = proceso preorbital; Pt = terigoide; Z = zigomático.

Otra especie adicional fue descrita unos años más tarde (Muizon et al., 1999). Odobenocetops leptodon también fue encontrado en la Formación Pisco, sin embargo, proviene de un horizonte alrededor de un millón de años más joven que donde se encontró O. peruvianus. Algunas de las características que distinguen a esta nueva especie es un rostro más grande y redondeado, mayor tamaño del paladar y la presencia de fosas (depresiones) para los sacos premaxilares. La ocurrencia de esta última estructura que menciono, se correlaciona con la presencia del órgano del melón (Mead, 1975), la cual es una estructura utilizada para ecolocalización. O. peruvianus aparentemente carecía de esta estructura ya que carece de fosas para los sacos premaxilares, sin embargo, la posición de las órbitas y la forma de los procesos supraorbitales le permitía tener visión binocular; en O. leptodon los procesos supraorbitales eran distintos y sus orbitas estaban posicionadas más hacia el lado, careciendo de visión binocular, pero al menos auxiliado por la presencia del órgano del melón y la capacidad de hacer ecolocalización. Así que al parecer, O. peruvianus dependía de la visión para localizar su alimento, mientras que O. leptodon probablemente dependía mayormente de ecolocalización (como es el caso de muchos otros delfinoideos).

Los odobenocetópsidos están relacionados al único otro grupo de cetáceos que tienen colmillos agrandados, los narvales. Estos también tienen un colmillo agrandado (y en ocasiones los dos), pero estos están orientados hacia adelante. En los odobenocetópsidos la función de estos colmillos parece haber sido social ya que presentan dimorfismo sexual; los machos poseen un colmillo (el de la derecha) más agrandado que el otro (algunos hasta midiendo más de un metro), mientras que en las hembras ambos eran más pequeños y similares en tamaño (Muizon et al., 1999; Muizon & Domning, 2002).

Reconstrucción de Odobenocetops ilustración de Mary Parrish (National Museum of Natural History, Washingon, DC), tomado de Muizon et al. (1999).

¿Que pudo llevar a un delfínido a parecer una morsa?

El parecido de los odobenocetópsidos a las morsas (convergencia) llevó a los paleontólogos que los han estudiado a inferir que su modo de alimentación era muy similar. O sea, que posiblemente, al igual que las morsas, los odobenocetópsidos se alimentaban de bivalvos bentónicos (que viven en el suelo marino), localizándolos con asistencia de los bigotes, aguantando el bivalvo con los labios y utilizando la lengua como un pistón, creando un vacío dentro de la cavidad bucal para lograr succionar el organismo fuera de su concha.

La distribución geográfica de las morsas, tanto vivas como las fósiles, está limitada al hemisferio norte (Deméré et al., 2003). Asumiendo que las especies extintas de morsas tenían las mismas preferencias alimenticias que la especie moderna (y al parecer así era) y al tener una distribución limitada, ese espacio ecológico, ocupado por las morsas en el hemisferio norte, estuvo “vacío” en el sur. Es así que posiblemente surgió este caso de convergencia, donde un delfinoideo termina pareciendo una morsa, ocupando ese espacio ecológico y utilizando los recursos disponibles.

Este es uno de los casos en paleontología donde el presente es la llave del pasado. Si no conocieramos las morsas habría sido muy difícil interpretar la funcionalidad morfológica de estos extraños delfinoideos.

Deméré, T. A., A. Berta & P. J. Adam. 2003. Pinnipedimorph evolutionary biogeography. Bulletin of the American Museum of Natural History 13 (279):32-76.

Mead, J. G. 1975. Anatomy of the external nasal pasajes and facial complex in the Delphinidae (Mammalia, Cetacea). Smithsonian Contributions to Zoology 207:1-72.

Muizon, C. de. 1993. Walrus-like feeding adaptation in a new cetacean from the Pliocene of Peru. Nature 365:745-748.

Muizon, C. de & D. P. Domning. 2002. The anatomy of Odobenocetops (Delphinoidea, Mammalia), the walrus-like dolphin from the Pliocene of Peru and its paleobiological implications. Zoological Journal of the Linnean Society 134:423-452.

Muizon, C. de, D. P. Domning & M. Parrish. 1999. Dimorphic tusas and adaptive strategies in a new species of walrus-like dolphin (Odobenocetopsidae) from the Pliocene of Peru. Comptes-rendus de l’Academie des Sciences, Paris, Sciences de la Terre et des Planetes 329:449-455.

Tuesday, June 9, 2009

From land to sea

Some of the living marine mammals, like cetaceans, sirenians and pinnipeds* are so well adapted to a life in water that it might be difficult for us to relate them to their closest terrestrial relatives. However, we do know that the oldest members of these groups were indeed terrestrial. Here I’ll discuss some of the evidence known so far.

*(cetaceans = whales & dolphins; sirenians = manatees & dugongs; pinnipeds = seals, walruses & sea lion).

Cetaceans

Modern whales can be divided into two groups, odontocetes and mysticetes. Odontocetes are characterized for having teeth and using echolocation; mysticetes are characterized for having baleen instead of teeth (there are other adaptations that I won’t discuss now). Some examples of odontocetes are orcas and bottlenose dolphins; mysticetes include blue whales and right whales.

Based on molecular evidence, whales evolved from artiodactyls – a group that includes pigs, hippopotamus, camels, cows, lambs, etc – (Graur & Higgins, 1994; Shimamura et al., 1997), whereas, for a long time, morphological studies used to indicate a close relationship with mesonychids – a group of extinct terrestrial carnivores – (Luo & Gingerich, 1999). In part, the reason for this disagreement about the origin of whales was that the oldest fossils of cetaceans consisted of forms that were already completely adapted to a life in the water, or were only known from crania. This has already been resolved.

In 2001, two groups of paleontologist published papers where they described primitive cetaceans, including parts of the postcranium that corroborated an artiodactyl relationship (Gingerich et al., 2001; Thewissen et al., 2001). Gingerich and his team found remains of Artiocetus clavis and Rhodocetus balochistanensis, whereas the Thewissen team described Ichthyolestes pinfoldi and Pakicetus attocki (illustration above of Pakicetus by Carl Buell, taken from the Thewissen Lab webpage); the remains included one of the ankle bones, the astragalus, which was key to determine that cetaceans evolved from artiodactyls. All these fossils were found Middle Eocene (49-41 million years ago) deposits. More recently, Thewissen et al. (2007) describe postcranial material of the primitive artiodactyl, Indohyus, and show that it was an animal with aquatic adaptations, providing additional evidence about the origin of cetaceans. (Go here for a magnificent reconstruction of Indohyus).

Sirenians

The closest living relatives of manatees and dugongs are elephants, this relationships is supported by both, molecular and morphological evidence (Seiffert, 2007; Tabuce et al. 2007). Sirenians originated in northern Africa about 54 million years ago, where they last shared a common ancestor with proboscideans (elephants). Interestingly, the most primitive sirenian fossils have been found in Jamaica, which demonstrate that, very early, they seem to have been well adapted for life in an aquatic environment. For a long time, the most primitive sirenian known was Prorastomus sirenoides found in Jamaica in deposits that are between 51-49 million years old (Owen, 1855; Savage et al., 1994). Unfortunately, the postcranium was and it is still mostly unknown.

Another sirenian from Jamaica, found in slightly younger deposits – 49-45 million years old – was described by Domning (2001). The remains of this new sirenian, named Pezosiren portelli (illustration above from Domning, 2001), include cranial and postcranial material. The postcranial material include fore and hind limbs, pelvis and most of the vertebral column; all together, these indicate that Pezosiren was able to support its own weight on land, but at the same time, it had aquatic adaptations such as pachyosteosclerotic (enlarged & dense) ribs and in the cranium, retracted external nares (Domning, 2001). The combination of characters imply that Pezosiren spent time, both, in and out of the water.

Pinnipeds

Morphological and molecular studies show that pinnipeds belong to a group of mammals called arctoids (Deméré et al., 2003), that, along with pinnipeds, includes bears (ursids), weasels (mustelids), raccoons (procyonids) and skunks (mephitids), among others. Nonetheless, the origin of pinnipeds from one of these arctoids is not clear, and different studies place pinnipeds as originating from a common ancestor with mustelids or with ursids (Deméré et al., 2003). Other experts in the field support a multiple origin for pinnipeds, with seals sharing a common ancestor with mustelids and sea lion and walruses with ursids (Uhen, 2007 and references therein). Anyways, whatever is the group from which pinnipeds originated – this can only be resolved by finding more fossils – it is well known that these originate from a terrestrial ancestor. Interestingly, pinniped fossils that show a transitional morphology had not been found until recently.

The discovery of Puijila darwini in lacustrine sediments deposited between 23-21 million years ago, gives us an idea about the morphology of the earliest pinnipeds (Rybczynski et al., 2009). Although fossils of yet even older pinnipeds, such as Enaliarctos tedfordi and E. barnesi, have been found in rocks that date between 28.5-23.8 million years in Oregon (Deméré et al., 2003), these already show full adaptations to a life in the marine realm like those observed in modern taxa; this means that pinnipeds must have evolved previous to that date. So, even if Puijila (illustration above from Rybczynski et al., 2009) comes from younger deposits, its importance rests in that morphologically it is the most primitive known pinnipeds, providing evidence about the evolutionary steps that were taken in the transition from land to sea in this group of mammals.

Puijila the official website

Puijila in National Geographic

Also, here is the Spanish version of this post.

References

Deméré, T. A., A. Berta & P. J. Adams. 2003. Pinnipedomorph evolutionary biogeography. Bulletin of the American Museum of Natural History 279:32-76.

Domning, D. P. 2001. The earliest known fully quadrupedal sirenian. Nature 413:625-627.

Gingerich, P. D., M. ul Haq, I. S. Zalmout, I. H. Khan & M. S. Malkani. 2001. Origin of whales from early artiodactyls: hands and feet of Eocene Protocetidae from Pakistan. Science 293:2239-2242.

Graur, D. & D. G. Higgins. 1994. Molecular evidence for the inclusion of cetaceans within the order Artiodactyla. Molecular Biology and Evolution 11(3):357-364.

Luo, Z. & P. D. Gingerich. 1999. Terrestrial Mesonychia to aquatic Cetacea: transformation of the basicranium and evolution of hearing in whales. University of Michigan Papers on Paleontology 31:1-98.

Owen, R. 1855. On the fossil skull of a mammal (Prorastomus sirenoides, Owen), from the island of Jamaica. Quarterly Journal of the Geological Society of London 11:541-543.

Rybczynski, N., M. R. Dawson & R. H. Tedford. 2009. A semi-aquatic Arctic mammalian carnivore from the Miocene epoch and origin of Pinnipedia. Nature 458:1021-1024.

Savage, R. J. G., D. P. Domning & J. G. M. Thewissen. 1994. Fossil Sirenia of the West Atlantic and Caribbean region. V. Prorastomus sirenoides Owen, 1855. Journal of Vertebrate Paleontology 14(3):427-449.

Seiffert, E. R. 2007. A new estimate of afrotherian phylogeny based on simultaneous analysis of genomic, morphological, and fossil evidence. BMC Ecolutionary Biology 7:224 Open access

Shimamura, M., H. Yasue, K. Ohshima, H. Abe, H. Kato, T. Kishiro, M. Goto, I. Munechika & N. Okada. 1997. Molecular evidence from retroposons that whales form a clade within even-toed ungulates. Nature 388:666-670.

Tabuce, R., L. Marivaux, M. Adaci, M. Bensalah, J.-L. Hartenberger, M. Mahboubi, F. Mebrouk, P. Tafforeau & J.-J. Jaeger. 2007. Early Tertiary mammals from North Africa reinforce the molecular Afrotheria clade. Proceedings of the Royal Society B 274:1159-1166.

Thewissen, J. G. M., E. M. Williams, L. J. Roe & S. T. Hussain. 2001. Skeletons of terrestrial cetaceans and the relationship of whales to artiodactyls. Nature 413:277-281.

Thewissen, J. G. M., L. N. Cooper, M. T. Clementz, S. Bajpai & B. N. Tiwari. 2007. Whales originated from aquatic artiodactyls in the Eocene epoch of India. Nature 450:1190-1195.

Uhen, M. D. 2007. Evolution of marine mammals: back to the sea after 300 million years. Anatomical Record 290:514-522.

Sunday, April 26, 2009

De la tierra al agua

Algunos de los mamíferos marinos que existen hoy día, como los cetáceos, sirénidos y pinípedos*, están tan adaptados a una vida en el agua, que puede que se nos haga difícil relacionarlos con sus parientes más cercanos los cuales son terrestres. Aquí les voy a dar un poco de información sobre la evidencia que existe hasta ahora sobre la trancición de la tierra al agua en estos grupos de organismos.

*(cetáceos = ballenas y delfines; sirénidos = manatí y dugong; pinípedos = focas, morsas y leones marinos).

Cetáceos

Las ballenas que conocemos hoy día se pueden dividir en dos grupos, los odontocetos y misticetos. Los odontocetos se caracterizan por tener dientes y utilizar ecolocalización; los misticetos se caracterizan por tener barbas en lugar de dientes (ambos grupos tienen otras adaptaciones que discutiré en otro momento). Ejemplos de odontocetos son las orcas y delfines; las misticetos incluyen ballenas azules y ballenas pigmeas.

Estudios moleculares idicaban que las ballenas evolucionaron de los artiodáctilos – grupo que incluye a los cerdos, hipopótamos, camellos, vacas, ovejas, etc – (Graur & Higgins, 1994; Shimamura et al., 1997). Estudios morfológicos solían indicar que los cetáceos habían evolucionado de los mesoniquios – un grupo extinto de mamíferos terrestres carnívoros – (Luo & Gingerich, 1999). En parte, la razón para que existiera esa discrepancia sobre los orígenes de los cetáceos era que los fósiles de cetáceos más antiguos consistían de formas ya completamente adaptadas a una vida en el agua, o solamente se conocía el cráneo. Ya esto ha sido resuelto.

En el 2001, dos grupos de paleontólogos publicaron trabajos donde describían fósiles de ballenas primitivas, incluyendo partes del postcráneo que demostraban que estas estaban relacionadas a los artiodáctilos (Gingerich et al., 2001; Thewissen et al., 2001). Gingerich y su equipo recuperaron los restos de dos Artiocetus clavis y Rhodocetus balochistanensis, mientras que el grupo de Thewissen recuperaron los de Ichthyolestes pinfoldi y Pakicetus attocki (ilustración adyacente de Pakicetus por Carl Buell, tomado de la página del Thewissen Lab); entre las partes que encontraron incluía uno de los huesos del tobillo, el astrágalo, que fue la pieza clave para determinar que los cetáceos evolucionaron de los artiodáctilos. Todos estos fósiles fueron encontrado en sedimentos que datan del Eoceno Medio (entre 49 y 41 millones de años). Recientemente, Thewissen et al. (2007) describen los restos postcraneales del artiodáctilo primitivo, Indohyus, y demuestran que este era un animal con adaptaciones acuáticas y provee evidencia adicional sobre el origen de los cetáceos. (Una reconstrucción magnífica de Indohyus puede ser vista aquí.)

Sirénidos

Los parientes vivos más cercanos de los manatíes y dugones son los elefantes, esto está evidenciado tanto por información morfológica como genética (Seiffert, 2007; Tabuce et al. 2007). EL origen de los sirénidos fue en África alrededor de 54 millones de años donde compartieron un ancestro en común con los elefantes. Interesantemente, los fósiles de sirénidos más primitivos se han encontrado en Jamaica, lo cual demuestra que muy temprano en su historia evolutiva ya estaban adaptados a una vida en ambientes marinos. Durante mucho tiempo, el sirénido fósil más primitivo era Prorastomus sirenoides encontrado en Jamaica en depósitos que datan de 51-49 millones de años (Owen, 1855; Savage et al., 1994). Sin embargo, el postcráneo de este organismo todavía sigue siendo desconocido.

Otro sirénido fósil, también de Jamaica, pero encontrado en depósitos un poco más jovenes (49-45 millones de años), fue descrito por Domning (2001). Este nuevo fósil, llamado Pezosiren portelli (ilustración arriba tomada de Domning, 2001), consiste de partes del cráneo y postcráneo. Los restos postcraneales de Pezosiren incluye los brazos, patas, pelvis y casi toda la columna vertebral; en conjunto, estos indican que este organismo era capaz de soportar su cuerpo fuera del agua a la misma vez, también tiene adaptaciones acuáticas como costillas agrandadas y densas y la fosa nasal retractada (Domning, 2001). Esta combinación de adaptaciones indican que este organismo pasaba tiempo tanto dentro como fuera del agua.

Pinípedos

Estudios morfológicos y moleculares demuestran que los pinípedos pertenecen a un grupo de mamíferos llamado arctoideos (Deméré et al., 2003), que además de los pinípedos, incluyen a los osos (úrsidos), mustelas (mustélidos), mapaches (prociónidos) y zorrilos (mefítidos) entre otros. Sin embargo, el origen de los pinípedos de alguno de estos otros arctoideos no es clara y diferentes estudios ponen a los pinípedos originándose de un ancestro en común con los mustélidos o con los úrsidos (Deméré et al., 2003). Otros expertos en la materia apoyan la idea que los pinípedos tienen origenes separados, las focas evolucionando de un ancestro en común con los mustélidos y los leones marinos y morsas con los úrsido (Uhen, 2007 y referencias ahí). Cualquiera que sea el grupo del cual los pinípedos se originaron, algo que solo se podrá aclarar a medida que se descubren más fósiles, sabemos que se originan de un organismo terrestre. Interesantemente, fósiles de pinípedos que demuestren una morfología transicional, entre completamente marino / completamente terrestre, no fueron encontrados hasta hace poco.

El reciente descubrimiento de Puijila darwini en sedimentos lacustrinos depositados entre 23-21 millones de años, nos da una idea sobre la morfología de los primeros pinípedos (Rybczynski et al., 2009). Aunque ya se han econtrado restos de pinípedos más antiguos, Enaliarctos tedfordi y E. barnesi encontrados en rocas que datan de entre 28.5-23.8 en Oregon (Deméré et al., 2003), estos ya presentan adaptaciones a una vida marina como las que vemos en las especies modernas, lo cual significa que los pinípedos deben haber evolucionado previo a esta fecha. Así que aunque Puijila (ilustración adyacente tomada de Rybczynski et al., 2009) es más joven, su importancia resta en que su morfología es la más primitiva de los pinípedos conocidos, proveyendo además evidencia sobre los posibles pasos evolutivos que se llevaron a cabo en la transición de la tierra al agua en este grupo de mamíferos.

Gracias a MPT y YFS por ayudar con la gramática.

Página oficial de Puijila

Puijila en National Geographic

English version here.

Referencias

Deméré, T. A., A. Berta & P. J. Adams. 2003. Pinnipedomorph evolutionary biogeography. Bulletin of the American Museum of Natural History 279:32-76.

Domning, D. P. 2001. The earliest known fully quadrupedal sirenian. Nature 413:625-627.

Gingerich, P. D., M. ul Haq, I. S. Zalmout, I. H. Khan & M. S. Malkani. 2001. Origin of whales from early artiodactyls: hands and feet of Eocene Protocetidae from Pakistan. Science 293:2239-2242.

Graur, D. & D. G. Higgins. 1994. Molecular evidence for the inclusion of cetaceans within the order Artiodactyla. Molecular Biology and Evolution 11(3):357-364.

Luo, Z. & P. D. Gingerich. 1999. Terrestrial Mesonychia to aquatic Cetacea: transformation of the basicranium and evolution of hearing in whales. University of Michigan Papers on Paleontology 31:1-98.

Owen, R. 1855. On the fossil skull of a mammal (Prorastomus sirenoides, Owen), from the island of Jamaica. Quarterly Journal of the Geological Society of London 11:541-543.

Rybczynski, N., M. R. Dawson & R. H. Tedford. 2009. A semi-aquatic Arctic mammalian carnivore from the Miocene epoch and origin of Pinnipedia. Nature 458:1021-102.

Savage, R. J. G., D. P. Domning & J. G. M. Thewissen. 1994. Fossil Sirenia of the West Atlantic and Caribbean region. V. Prorastomus sirenoides Owen, 1855. Journal of Vertebrate Paleontology 14(3):427-449.

Seiffert, E. R. 2007. A new estimate of afrotherian phylogeny based on simultaneous analysis of genomic, morphological, and fossil evidence. BMC Ecolutionary Biology 7:224 Open access

Shimamura, M., H. Yasue, K. Ohshima, H. Abe, H. Kato, T. Kishiro, M. Goto, I. Munechika & N. Okada. 1997. Molecular evidence from retroposons that whales form a clade within even-toed ungulates. Nature 388:666-670.

Tabuce, R., L. Marivaux, M. Adaci, M. Bensalah, J.-L. Hartenberger, M. Mahboubi, F. Mebrouk, P. Tafforeau & J.-J. Jaeger. 2007. Early Tertiary mammals from North Africa reinforce the molecular Afrotheria clade. Proceedings of the Royal Society B 274:1159-1166.

Thewissen, J. G. M., E. M. Williams, L. J. Roe & S. T. Hussain. 2001. Skeletons of terrestrial cetaceans and the relationship of whales to artiodactyls. Nature 413:277-281.

Thewissen, J. G. M., L. N. Cooper, M. T. Clementz, S. Bajpai & B. N. Tiwari. 2007. Whales originated from aquatic artiodactyls in the Eocene epoch of India. Nature 450:1190-1195.

Uhen, M. D. 2007. Evolution of marine mammals: back to the sea after 300 million years. Anatomical Record 290:514-522.